
15.2: Прокаріотична транскрипція
- Page ID
- 1907

Навички для розвитку
- Перерахуйте різні етапи прокаріотичної транскрипції
- Обговоріть роль промоутерів у транскрипції прокаріотів
- Опишіть, як і коли припиняється транскрипція
Прокаріоти, до яких відносяться бактерії та археї, в основному є одноклітинними організмами, яким, за визначенням, не вистачає мембрано-зв'язаних ядер та інших органел. Бактеріальна хромосома - це ковалентно замкнуте коло, яке, на відміну від еукаріотичних хромосом, не організовано навколо гістонових білків. Центральна область клітини, в якій знаходиться прокаріотична ДНК, називається нуклеоїдом. Крім того, прокаріоти часто мають рясні плазміди, які є коротшими круговими молекулами ДНК, які можуть містити лише один або кілька генів. Плазміди можуть передаватися незалежно від бактеріальної хромосоми під час поділу клітин і часто мають такі ознаки, як стійкість до антибіотиків.
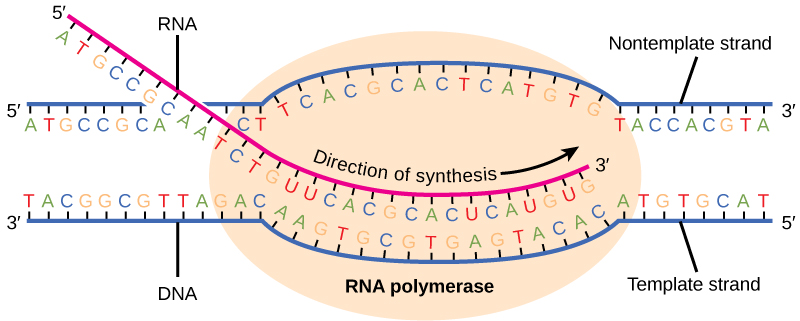
Транскрипція у прокаріотів (і у еукаріотів) вимагає подвійної спіралі ДНК, щоб частково розкрутити в області синтезу мРНК. Область розмотування називається транскрипційним міхуром. Транскрипція завжди виходить з однієї і тієї ж нитки ДНК для кожного гена, яка називається шаблонної ниткою. Продукт мРНК доповнює шаблонну нитку і майже ідентичний іншій нитці ДНК, яка називається нешаблонної ниткою. Різниця лише в тому, що в мРНК все Т-нуклеотиди замінені нуклеотидами U. У подвійній спіралі РНК A може зв'язувати U за допомогою двох водневих зв'язків, так само, як при сполученні A—T у подвійній спіралі ДНК.
Нуклеотидна пара в подвійній спіралі ДНК, яка відповідає ділянці, з якого транскрибується перший 5' нуклеотид мРНК, називається сайтом +1, або місцем ініціації. Нуклеотиди, що передують місцю ініціації, задаються негативними числами і позначаються вище за течією. І навпаки, нуклеотиди, що слідують за місцем ініціації, позначаються нумерацією «+» і називаються нуклеотидами нижче за течією.
Початок транскрипції в прокаріотів
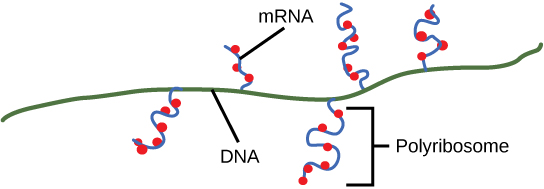
Прокаріоти не мають мембранно закритих ядер. Тому процеси транскрипції, трансляції та деградації мРНК можуть відбуватися одночасно. Внутрішньоклітинний рівень бактеріального білка може швидко посилюватися багаторазовими подіями транскрипції та трансляції, що відбуваються одночасно на одному шаблоні ДНК. Прокаріотична транскрипція часто охоплює більше одного гена і виробляє поліцистронові мРНК, які визначають більше одного білка.
Наша дискусія тут буде прикладом транскрипції, описуючи цей процес у Escherichia coli, добре вивченому бактеріальному виді. Хоча існують деякі відмінності між транскрипцією кишкової палички та транскрипцією в архей, розуміння транскрипції кишкової палички може бути застосовано практично до всіх видів бактерій.
Прокаріотична РНК-полімераза
Прокаріоти використовують ту ж РНК-полімеразу для транскрибування всіх своїх генів. У кишкової палички полімераза складається з п'яти поліпептидних субодиниць, дві з яких ідентичні. Чотири з цих субодиниць, що позначаються α, α, β та β', складають фермент ядра полімерази. Ці субодиниці збираються щоразу, коли ген транскрибується, і вони розбираються після завершення транскрипції. Кожна субодиниця має унікальну роль; дві α -субодиниці необхідні для складання полімерази на ДНК; β -субодиниця зв'язується з рибонуклеозидтрифосфату, який стане частиною зароджується «недавно народженої» молекули мРНК; і β' зв'язує ланцюг шаблону ДНК. П'ята субодиниця, σ, бере участь тільки в ініціації транскрипції. Він надає транскрипційної специфічності такої, що полімераза починає синтезувати мРНК з відповідного місця ініціації. Без σ основний фермент транскрибується з випадкових сайтів і виробляв би молекули мРНК, які вказували білок тарабарство. Полімераза, що складається з усіх п'яти субодиниць, називається голоферментом.
Прокаріотичні промоутери
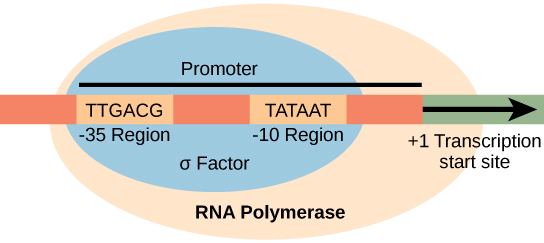
Промоутер - це послідовність ДНК, на яку транскрипційний механізм зв'язується та ініціює транскрипцію. У більшості випадків промотори існують вище за течією генів, які вони регулюють. Конкретна послідовність промотора дуже важлива, оскільки вона визначає, чи транскрибується відповідний ген весь час, деякий час чи нечасто. Хоча промоутери різняться між прокаріотичними геномами, деякі елементи зберігаються. У регіонах -10 та -35 вище за течією від місця ініціації є дві послідовності консенсусу промоторів або регіони, схожі між усіма промоторами та різними видами бактерій (Рисунок\(\PageIndex{1}\)). Послідовність консенсусу -10, звана областю -10, є TATAAT. Послідовність -35, TTGACA, розпізнається і пов'язана σ. Після того, як ця взаємодія здійснена, субодиниці ферменту ядра зв'язуються з ділянкою. A-T-багата область -10 полегшує розмотування шаблону ДНК, і виготовляється кілька фосфодіефірних зв'язків. Фаза ініціації транскрипції закінчується виробництвом абортивних стенограм, які є полімерами приблизно 10 нуклеотидів, які виготовляються та звільняються.
Посилання на навчання
Перегляньте цю анімацію MolecularMovies, щоб побачити першу частину транскрипції та повторення базової послідовності вікна TATA.
Подовження і припинення у прокаріотів
Фаза подовження транскрипції починається з виходу субодиниці σ з полімерази. Дисоціація σ дозволяє ферменту ядра протікати вздовж шаблону ДНК, синтезуючи мРНК у напрямку 5' до 3' зі швидкістю приблизно 40 нуклеотидів в секунду. У міру подовження ДНК безперервно розмотується попереду ферменту ядра і перемотується за ним (рис.\(\PageIndex{2}\)). Спарювання основи між ДНК та РНК недостатньо стабільне для підтримки стабільності компонентів синтезу мРНК. Натомість РНК-полімераза діє як стабільний зв'язувач між шаблоном ДНК та зароджуються нитками РНК, щоб гарантувати, що подовження не переривається передчасно.
Сигнали припинення прокаріотів
Після транскрибування гена прокаріотичної полімеразі потрібно доручити дисоціювати від шаблону ДНК та звільнити новоспечену мРНК. Залежно від гена, який транскрибується, існує два види сигналів припинення. Один - на основі білків, а інший - на основі РНК. RHO-залежне припинення контролюється білком rho, який відстежує вздовж за полімеразою на зростаючому ланцюжку мРНК. Близько кінця гена полімераза стикається з пробігом G нуклеотидів на шаблоні ДНК, і він затихає. В результаті цього Rho білок стикається з полімеразою. Взаємодія з rho вивільняє мРНК з міхура транскрипції.
RHO-незалежне припинення контролюється специфічними послідовностями в ланцюжку шаблону ДНК. Коли полімераза наближається до кінця транскрибуваного гена, вона стикається з областю, багатою нуклеотидами C—G. МРНК згортається назад на себе, а комплементарні нуклеотиди C—G зв'язуються разом. Результатом є стабільна шпилька, яка змушує полімеразу зупинятися, як тільки вона починає транскрибувати область, багату нуклеотидами A-T. Додаткова U—A область стенограми мРНК утворює лише слабку взаємодію з ДНК шаблону. Це, в поєднанні з застопорилася полімеразою, викликає достатню нестабільність, щоб основний фермент відірвався і звільнив нову стенограму мРНК.
Після закінчення процес транскрипції завершується. До того часу, коли відбудеться припинення, прокаріотична розшифровка вже була б використана для початку синтезу численних копій закодованого білка, оскільки ці процеси можуть відбуватися одночасно. Уніфікація транскрипції, трансляції і навіть деградації мРНК можлива тому, що всі ці процеси відбуваються в одному напрямку 5' до 3', і тому, що немає мембранозного компартменталізації в прокаріотичній клітині (рис.\(\PageIndex{3}\)). На відміну від цього, наявність ядра в еукаріотичних клітині виключає одночасну транскрипцію і переклад.
Посилання на навчання
Відвідайте цю анімацію BioStudio, щоб побачити процес транскрипції прокаріотів.
Резюме
У прокаріотів синтез мРНК ініціюється в послідовності промоторів на шаблоні ДНК, що містить дві консенсусні послідовності, які набирають РНК-полімеразу. Прокаріотична полімераза складається з основного ферменту з чотирьох білкових субодиниць і білка σ, який допомагає лише з ініціацією. Подовження синтезує мРНК у напрямку 5' до 3' зі швидкістю 40 нуклеотидів в секунду. Припинення звільняє мРНК і відбувається або шляхом взаємодії рхо-білка, або утворенням шевелюри мРНК.
Глосарій
- консенсус
- Послідовність ДНК, яка використовується багатьма видами для виконання однакових або подібних функцій
- ядро фермент
- прокаріотична РНК-полімераза, що складається з α, α, β і β', але відсутня σ; цей комплекс виконує подовження
- вниз за течією
- нуклеотиди, що слідують за місцем ініціації у напрямку транскрипції мРНК; загалом послідовності, що знаходяться до 3' кінця відносно ділянки на мРНК
- шпилька
- структура РНК, коли вона згортається назад на себе і утворює внутрішньомолекулярні водневі зв'язки між комплементарними нуклеотидами
- голоензим
- прокаріотична РНК-полімераза, що складається з α, α, β, β' та σ; цей комплекс відповідає за ініціювання транскрипції
- ініціація сайт
- нуклеотид, з якого синтез мРНК протікає в напрямку 5' до 3'; позначається «+1»
- нешаблонна пасмо
- нитка ДНК, яка не використовується для транскрибування мРНК; ця нитка ідентична мРНК, за винятком того, що Т-нуклеотиди в ДНК замінені нуклеотидами U в мРНК
- плазміда
- екстрахромосомна, ковалентно закрита, кругова молекула ДНК, яка може містити лише один або кілька генів; поширена у прокаріотів
- промоутер
- Послідовність ДНК, з якою РНК-полімераза та пов'язані з ними фактори зв'язуються та ініціюють транскрипцію
- RHO-залежне припинення
- у прокаріотів припинення транскрипції взаємодією РНК-полімерази та rho-білка при запуску G нуклеотидів на шаблоні ДНК
- RHO-незалежний
- припинення послідовно-залежного припинення синтезу прокаріотичної мРНК; спричинене утворенням шпильки в мРНК, що затримує полімеразу
- Ящик ТАТА
- збережена послідовність промоторів у еукаріотів та прокаріотів, що допомагає встановити місце ініціації для транскрипції
- шаблон пасма
- нитка ДНК, яка визначає комплементарну молекулу мРНК
- транскрипція міхура
- область локально розмотаної ДНК, що дозволяє транскрипцію мРНК
- вгору за течією
- нуклеотиди, що передують місцю ініціації; загалом послідовності до 5' кінця відносно ділянки на мРНК