
14.1: Ембріональний розвиток
- Page ID
- 5696
У тварин зазвичай можна виділити 4 стадії ембріонального розвитку.
- Розщеплення
- Візерунки
- Диференціація
- Зростання
Розщеплення
Мітоз і цитокінез зиготи, незвично великої клітини, виробляє все більшу кількість менших клітин, кожна з яких має точну копію генома, присутнього в зиготі. Однак гени зиготи спочатку не виражені. Рання діяльність розщеплення контролюється геном матері; тобто мРНК та білками, які вона відкладається в незаплідненій яйцеклітині. У людей перемикання відбувається після того, як було вироблено 4-8 клітин; у жаб не до тих пір, поки не будуть вироблені тисячі клітин. Розщеплення закінчується утворенням бластули.
Візерунки
Під час цієї фази клітини, вироблені розщепленням, організовуються в шарах і масах, процес, званий гаструляцією. Виявляється візерунок майбутньої тварини:
- спереду ззаду (передньо-задня вісь)
- задня сторона і сторона живота (її спинно-черевна вісь)
- ліва і права сторони.
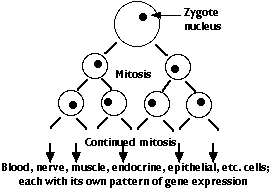
Геном зиготи містить всі гени, необхідні для створення сотень різних типів клітин, які складуть цілу тварину. Існує дві основні категорії цих генів:
- «домогосподарські» гени = ті, які кодують РНК і білки, необхідні всіляким клітинам. Приклади:
- гени для ТРНК, РРНК
- гени, що кодують ферменти гліколізу.
- тканинно-специфічні гени = ті, які кодують мРНК і, отже, білки, які використовуються одним або декількома конкретними видами клітин. Приклади:
- гени гемоглобіну, виражені в попередниках еритроцитів
- ген інсуліну, експресований в бета-клітині острівців Лангерганса
Однак кожна клітина, що зійшла з зиготи, була вироблена мітозом і, таким чином, містить повний геном організму (за дуже невеликим винятком).
Два докази:
- Доллі - Доллі - це вівця, яка утворилася шляхом вставки ядра з однієї клітини дорослої вівці в енуклейоване овече яйце. Вона доводить, що клітина від дорослої людини не втратила жодного гену, необхідного для побудови всіх тканин вівці.
- Експерименти зі зв'язування яєць Спемана - Багато років тому німецький ембріолог Ганс Спеманн продемонстрував ту ж істину. Він використовував пасма дитячого волосся, щоб зав'язувати петлі навколо заплідненої саламандри яєць. Хоча половина яйцеклітини з ядром почала нормально розщеплюватися, інша сторона не почала розщеплення, поки ядро остаточно не прослизне через вузол. Поки яйце було зав'язано так, що обидві половини містили частину сірого півмісяця, друга половина почала нормальне розщеплення і в кінцевому підсумку дала другий пуголовк (праворуч). Навіть після 5 мітотичного поділу ядра зиготи (32-клітинна стадія) весь геном все ще був доступний в кожному нащадковому ядрі.


- Запліднена яйцеклітина набагато більше нормальних клітин організму тварини. Деякі (наприклад, куряче яйце) справді величезні. Жаб'яче яйце має обсяг в 1,6 мільйона разів більше, ніж типова жаб'яча клітина. На фото 16-клітинний ембріон жаби. Ця маса клітин не більше вихідного яйцеклітини. Яйця ссавців менше, але навіть вони більші, ніж будуть їх нащадні клітини.
- Цитоплазма заплідненої яйцеклітини неоднорідна. Він містить градієнти мРНК і білків. Це продукти генів матері і були відкладені в яйцеклітині нею.
- Розщеплення заплідненої яйцеклітини розділяє її на тисячі клітин нормального розміру. Кожен містить ядро, що сходить від ядра зиготи.
- Але кожне ядро виявляється розділеним у цитоплазмі, що містить певну суміш мРНК та білків.
- Коли жаба бластула виробляє близько 4000 клітин, починається транскрипція і трансляція її ядерних генів (і молекули мРНК матері, які до цього часу були джерелом всього синтезу білка, руйнуються).
- Гени, які виражаються ядром у даній клітині, регулюються молекулами, переважно факторами транскрипції білків та мікроРНК (miRNA), що знаходяться в цитоплазмі, що оточує це ядро.
- Як тільки запускається специфічна для клітин картина експресії генів, ця клітина може вивільняти молекули, які регулюють гени сусідніх клітин.
- Таким чином закладається фундамент для побудови організму з сотнями типів диференційованих клітин — кожна у своєму правильному розташуванні та виконує свої правильні функції.
Ксенопус

- Під час утворення яйцеклітин молекули мРНК, що кодують білок VegT, відкладаються на вегетальному полюсі клітини.
- Клітини, які утворюються там при розщепленні, переводять мРНК в рослинний білок.
- VegT - це фактор транскрипції, який включає гени, які виробляють членів трансформуючого фактора росту-бета (TGF-β) сімейства (наприклад, активін).
- Ці білки потрібні клітинам, щоб почати шлях до становлення мезодерми.
- Деякі з цих клітин, в свою чергу, стануть організатором Spemann.
- Пізніше організатор Spemann буде виділяти молекули, які спонукають ектодермальні клітини над ними розвиватися в тканини головного і спинного мозку.
Демонстрація
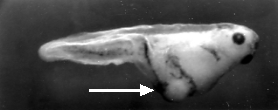
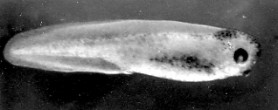
Вводять в передню частину заплідненої яйцеклітини нано-мРНК. Результат: ще одна подвійна задня личинка.
Зробіть жіночих плодових мушок, які трансгенні для рекомбінантного гена, що містить:
- ген для nanos
- з'єднаний з 3' передньо-спрямовуючим сигналом бікоїдного гена.

Праворуч показана нормальна личинка. Яскравим предметом на правому кінці нормальної личинки і на обох кінцях подвійної задньої личинки є кінчик хвоста. Ці мікрофотографії люб'язно надані Елізабет Гевіс і Рут Леманн, в лабораторії яких була проведена третя демонстрація.
Грязьовий равлик
Грязьовий равлик Ilyanassa olgeta - це невеликий черевоногий, який живе в грязьових квартирах уздовж узбережжя Атлантичного океану.
Як і інші протостоми, розщеплення зиготи виробляє дочірні клітини, які вже віддані своїй долі. Іншими словами, ще на двоклітинній стадії клітини вже не є тотипотентними. На відміну від людей та інших дейтеростоми, тоді однакові близнюки не можуть утворитися.
У випуску про природу 12 грудня 2002 року Дж. Девід Ламберт і Ліза Нагі повідомили про інший механізм, за допомогою якого дві дочірні клітини стають прихильними до різних долі, хоча вони успадкували один і той же геном.
Вони простежували розподіл в клітині ранніх ембріонів месенджерних РНК (МРНК), що кодують 3 білки, які, як відомо, важливі для розвитку інших тварин, таких як Xenopus і Drosophila.
- iOeVe, який є I lyanassa o bosleta версія парно-пропущеної (навіть) у дрозофіли;
- iODPP, який є версією равлика
- декапентаплегічний (dpp) у дрозофіли та гени, що кодують
- b один м орфогенних протеїнів р (BMP2 і BMP4) у хребетних
- IOTLD, який кодує равликову версію білка під назвою толоїд у дрозофіли.
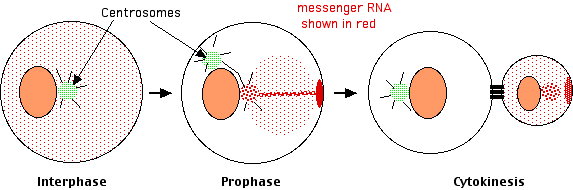
Ламберт і Надь виявили, що
- в інтерфазі месенджерні РНК були розподілені дифузно по всьому цитозолу, але
- коли клітина готувалася до розщеплення, мРНК зібрані лише в одній з нині пари центросом. Їх збирали там, подорожуючи по мікротрубочках, які випромінюють з центросоми.
- Коли розщеплення тривало, мРНК перемістилися від центросоми до плями на внутрішній поверхні плазматичної мембрани. Вони потрапили туди, подорожуючи по актинових нитках.
- При цитокінезі цей ділянку накопичених мРНК був включений виключно в меншу дочірню клітину.
Сортування центросом (білків в даному випадку) також відіграє роль у визначенні того, чи залишаються ембріональні клітини Caenorhabditis elegans в зародковій лінії або стають соматичними клітинами хробака.
Що буде далі?
Розвиток у ксенопса і дрозофіли проходить через три досить різні (хоча часто перекриваються) фази:
- Встановлення основних осей (передньо-задньої; спинно-черевної; ліво-правої). Це робиться градієнтами мРНК та білків, кодованих генами матері і поміщеними нею в яйцеклітину. Про це йшлося тут.
- Встановлення основних частин тіла, таких як нотохорда та центральна нервова система у хребетних та сегментів у дрозофіліВони управляються генами самої зиготи.
- Заповнення деталей; тобто побудова різних органів тварини.