
3.3: Інші міркування в мембранах
- Page ID
- 2552
Джерело: BiochemFFA_3_3.pdf. Весь підручник доступний безкоштовно від авторів за адресою http://biochem.science.oregonstate.edu/content/biochemistry-free-and-easy
Існує багато функцій і факторів, що стосуються клітинних мембран, які не вписуються в широкі категорії. Ці пункти будуть в центрі уваги цього розділу.
ендоцитоз
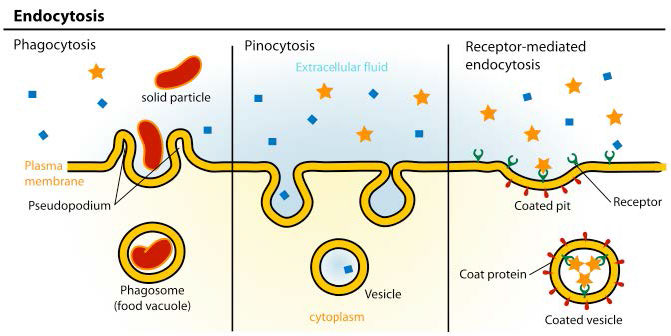
Крім транспортерних білків та іонних каналів, ще одним поширеним способом потрапляння матеріалів у клітини є процес ендоцитозу. Ендоцитоз - альтернативна форма активного транспорту для потрапляння матеріалів в клітини. Деякі з цих процесів, такі як фагоцитоз, здатні імпортувати набагато більші частинки, ніж це було б можливо через білок транспортера. Як і білки-транспортери, ендоцитоз використовує енергію для цієї мети (хоча це не так видно, як з транспортерами білка), але на відміну від транспортерів білка, процес не настільки специфічний для окремих молекул.
Як результат, процес зазвичай включає імпорт багатьох різних молекул кожного разу, коли він відбувається. Список сполук, що надходять до клітин таким чином, включає ЛПНЩ та їх вміст ліпідів, але він також включає такі речі, як залізо (упаковане в трансферин), вітаміни, гормони, білки і навіть деякі віруси прокрадаються цим засобом. Існує три види ендоцитозу, які ми розглянемо (рис. 3.53).
Рецепторний опосередкований ендоцитоз
Процес ендоцитозу, опосередкованого рецепторами, є відносно специфічним засобом введення молекул в клітини, оскільки він вимагає, щоб вхідний матеріал якось асоціювався з конкретним рецептором поверхні клітини. У прикладі малюнка 3.53 рецептором є клітинний рецептор ЛПНЩ. Інвагінації, покриті клатрином, як показано на малюнку, відомі як «ямки з покриттям». Механізм протікає з внутрішнім бутонірованием рецептора плазматичної мембрани (покритих бульбашками). Зв'язування ліганду (АПОБ-100 ЛПНЩ, наприклад, на рис. 3.54) з рецептором ЛПНЩ призводить до утворення мембранної інвагінації. Поглинені частинки ЛПНЩ плавляться, утворюючи ранню ендосому (рис. 3.55), а вміст згодом сортується та обробляється для використання клітиною.
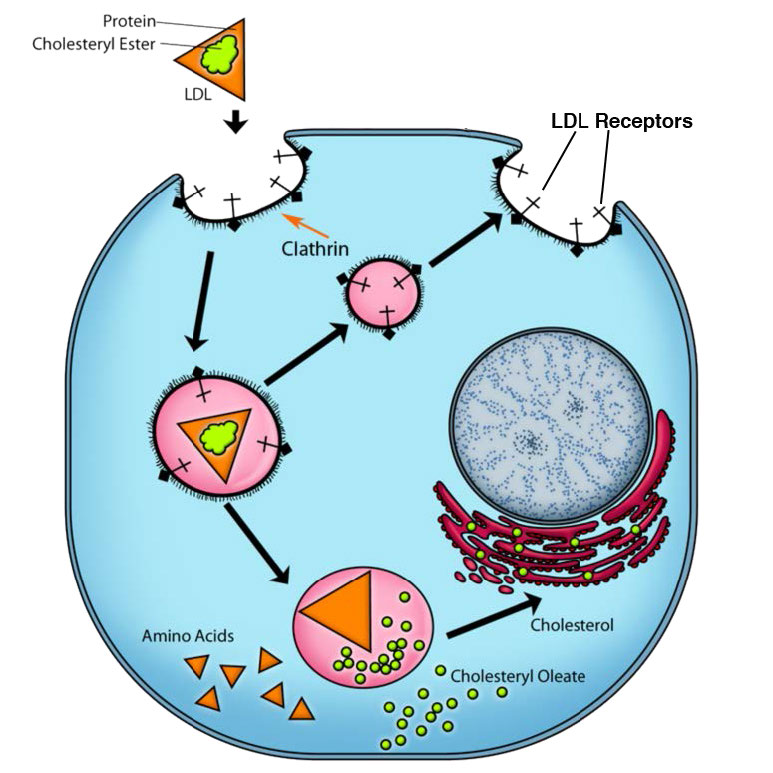
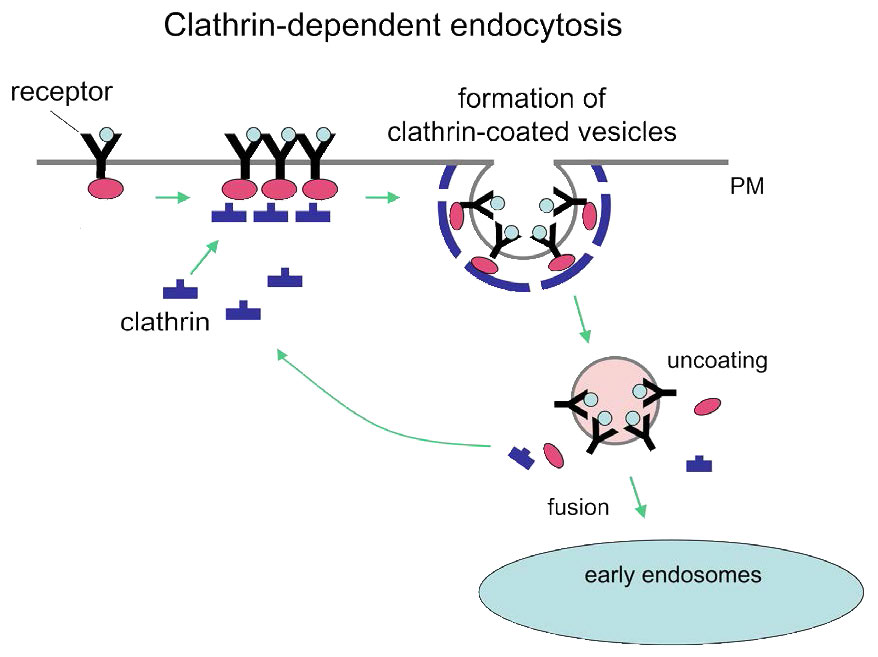
Компоненти з покритого бульбашки переробляються в плазмову мембрану для додаткових дій. Ендоцитоз, опосередкований рецепторами, також може відігравати певну роль у інтерналізації клітинних рецепторів, які функціонують в процесі сигналізації. Тут рецептор, пов'язаний з лігандом, заноситься в клітину і в кінцевому підсумку може генерувати відповідь в ядрі.
Хоча рецепторний опосередкований ендоцитоз рецепторів може мати ефект передачі сигналу всередину клітини, він також може зменшити загальну кількість сигналів, що відбуваються, оскільки кількість рецепторів на поверхні клітини зменшується процесом.
Ендоцитоз без клатрину
Існує три типи ендоцитозу, що відбуваються в клітині, які не залучають клатрин. Вони являють собою 1) ендоцитоз на основі кавеоли, 2) макропіноцитоз і 3) фагоцитоз. Ендоцитоз на основі кавеоли заснований на молекулі рецептора, відомої як кавеолін. Кавеоліни - це клас інтегральних мембранних білків, які компартментують і концентрують сигнальні молекули в процесі ендоцитозу. Вони названі на честь печеристих печеристих структур плазматичної мембрани, де вони знаходяться.
Кавеоліни
Кавеоліни мають спорідненість до холестерину і асоціюються з ним в мембрані клітин, викликаючи утворення мембранних інвагінацій близько 50 нм. Білки кавеоліну можуть олігомеризуватися, і це важливо для покриття та формування печеристих структур.
Є три гени кавеоліну, знайдені в клітині хребетних, CAV1, CAV2 та CAV3. Даун-регуляція кавеоліну-1 призводить до менш ефективної клітинної міграції in vitro. Кавеоліни беруть участь як в утворенні, так і в придушенні пухлин. Висока експресія їх пригнічує сигналізаційні шляхи фактора росту, пов'язані з раком, але деякі ракові клітини, що експресують кавеолін, є більш агресивними і метастатичними, можливі завдяки підвищеній здатності до росту, незалежного від анкерів.
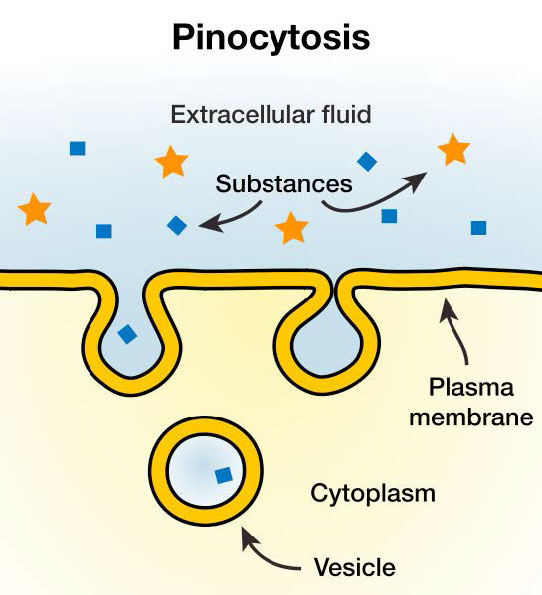
Макропіноцитоз
Явище, відоме як «пиття клітин», макропіноцитоз буквально включає клітину «залпом» позаклітинної рідини. Робиться це, як показано на малюнку 3.56, шляхом простого інвагінації скуйовджених поверхневих особливостей плазматичної мембрани. Кишеньковий результат, який відщипується всередині, щоб створити везикулу, що містить позаклітинну рідину та розчинені молекули. Всередині цитозолу ця інтерналізована везикула буде зливатися з ендосомами та лізосомами. Процес є неспецифічним для матеріалів, інтерналізованих.
фагоцитоз
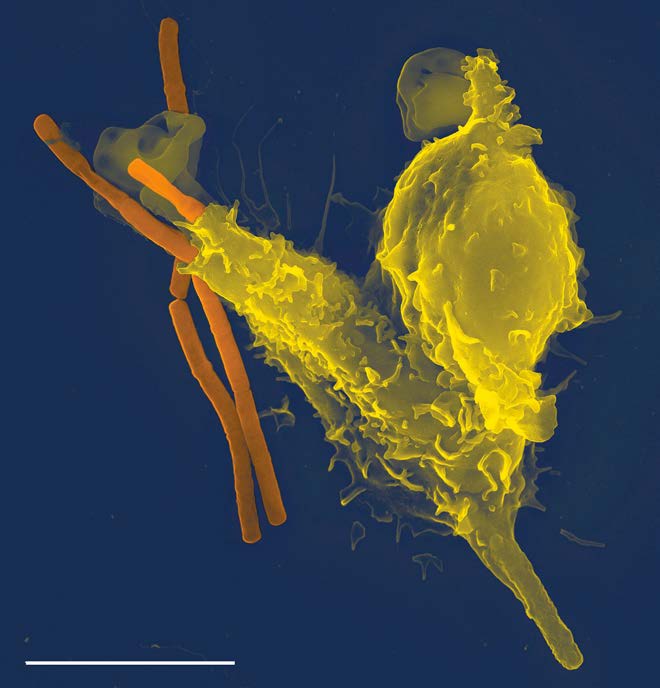
Фагоцитоз - це процес, при якому відносно великі частинки (0,75 мкм в діаметрі) інтеналізуються. Клітини імунної системи, такі як нейтрофіли, макрофаги та інші, використовують фагоцитоз для інтерналізації залишків клітин, апоптотичних клітин та мікроорганізмів.
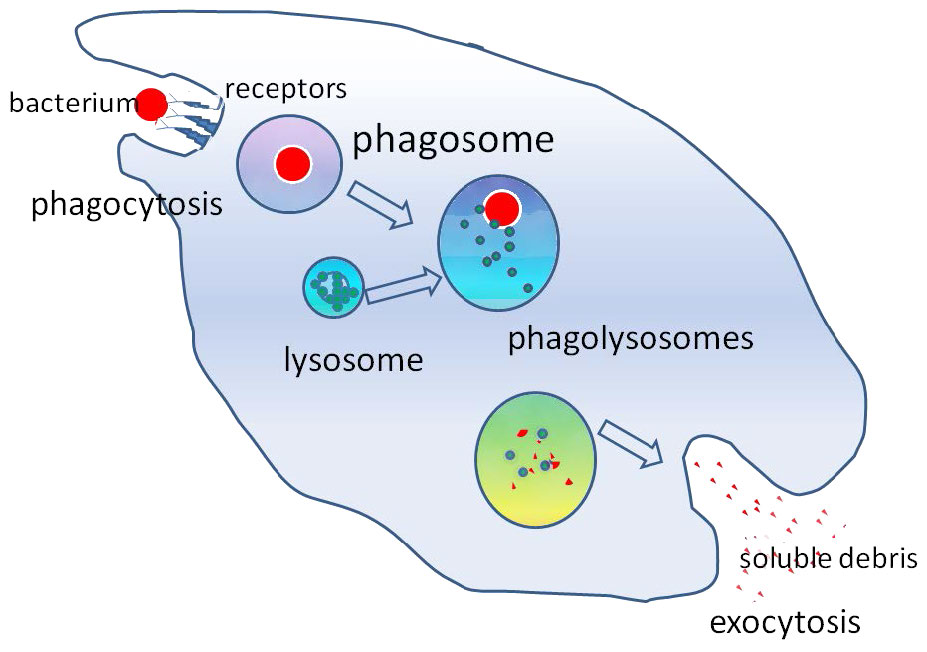
Процес діє через специфічні рецептори на поверхні клітини і фагоцитозуюча клітина поглинає свою ціль, зростаючи навколо неї. Інтерналізована структура відома як фагосома, яка швидко зливається з лізосомою для створення фаголізосоми (рис. 3.58), яка піддає поглинену частинку токсичним умовам, щоб вбити її, якщо це клітина, та/або перетравлювати її на менші шматки. У деяких випадках, як показано на малюнку, розчинний сміття може виділятися фагоцитозуючою клітиною.
Ендосоми
Інтерналізований матеріал з ендоцитозу, який не включає фагоцитоз, проходить через інтерналізовану структуру, яка називається ендосомою. Ендосоми - це мембранні обмежені структури всередині еукаріотичних клітин, які відіграють певну роль в ендоцитозі (рис. 3.59). Вони мають функцію сортування матеріалу, інтерналізованого в клітку, забезпечуючи пошук матеріалів, не призначених для руйнування в лізосомах. Наприклад, ЛПНЩ орієнтуються після ендоцитозу на ендосоми для обробки перед тим, як частина з них буде доставлена в лізосому. Ендосоми також можуть отримувати молекули з мережі Транс-Гольджі. Вони можуть бути доставлені до лізосом, а також, або перенаправлені назад до Гольджі. Ендосоми бувають трьох форм - 1) ранніх, 2) пізніх і 3) рециркуляційних.
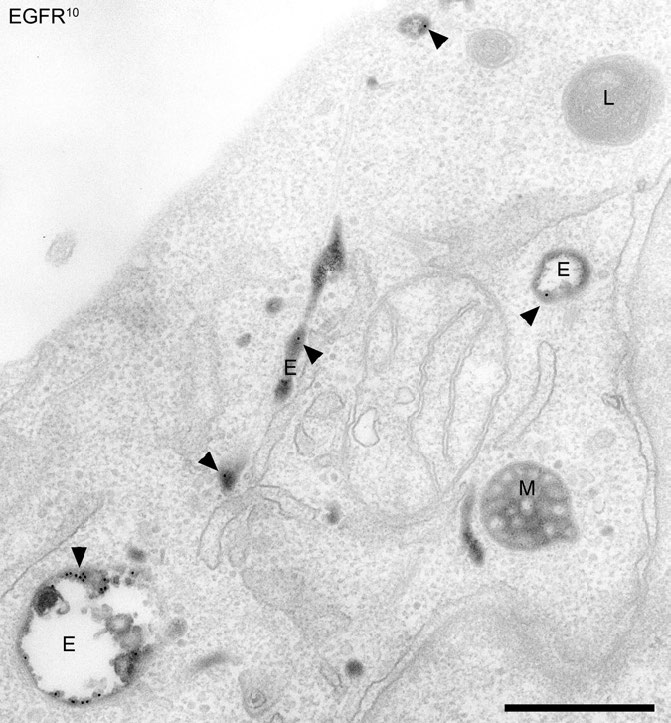
Малюнок 3.59 - Інтерналізація рецептора епідермального фактора росту (EGFR) в ендосоми. Ранні (E) та пізні (M) ендосоми та лізосоми (L) маркуються. - Вікіпедія
Екзоцитоз
Процес екзоцитозу використовується клітинами для експорту молекул з клітин, які інакше не пройшли б легко через плазматичну мембрану. В процесі секреторні бульбашки зливаються з плазматичною мембраною і виділяють свій вміст позаклітинно. Матеріали, такі як білки та ліпіди, вбудовані в мембрани бульбашок, стають частиною плазматичної мембрани, коли відбувається злиття між нею та везикулами.
Мембранний синтез
Fusion - це мембранний процес, де два різних ліпідних бішари зливають свої гідрофобні ядра, виробляючи одну взаємопов'язану структуру. Злиття мембран за участю везикул - це механізм, за допомогою якого відбуваються процеси ендоцитозу і екзоцитозу.
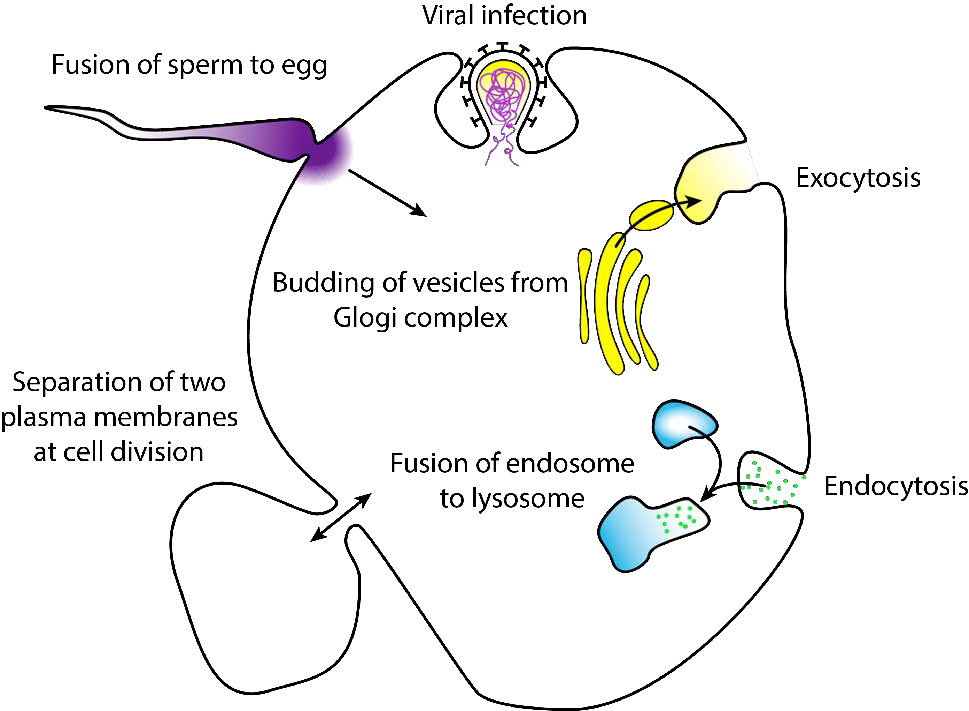
Коли злиття протікає через обидві стулки обох бішарів, виходить водний міст і вміст двох структур змішується. Загальні процеси, що включають злиття мембран (рис. 3.60), включають запліднення яйцеклітини сперматозоїдом, відділення мембран при поділі клітин, транспортування продуктів життєдіяльності і вивільнення нейромедіаторів (рис. 3.61). Штучні мембрани, такі як ліпосоми, також можуть зливатися з клітинними мембранами. Злиття також важливо для транспортування ліпідів від точки синтезу всередині клітини до мембрани, де вони використовуються. Надходження патогенів також може регулюватися злиттям, оскільки багато вірусів, покритих бішаром, використовують злиті білки при проникненні в клітини-господаря.
SNARE білки
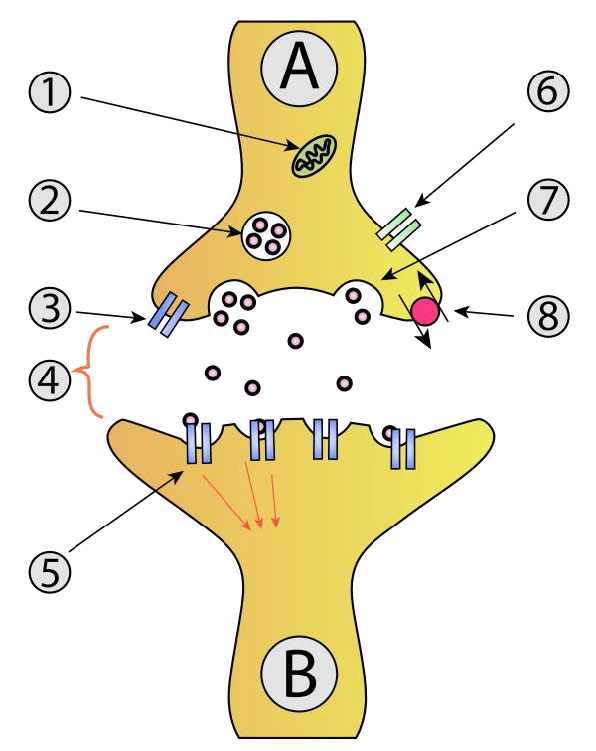
Посередництво злиття везикул в екзоцитозі здійснюється білками, відомими як SNARes (розчинний NSF Приєднання протеїнових рецепторів). Це велике надсімейство білків охоплює широкий біологічний діапазон, від дріжджів до ссавців. Загальні злиття бульбашок виникають, коли синаптичні бульбашки стикуються з нейронами (рис. 3.61) і вивільняють нейромедіатори. Вони добре вивчені. SNAREs, що беруть участь у цьому процесі, можуть бути протеолітично розщеплені бактеріальними нейротоксинами, які породжують умови ботулізму та правця.
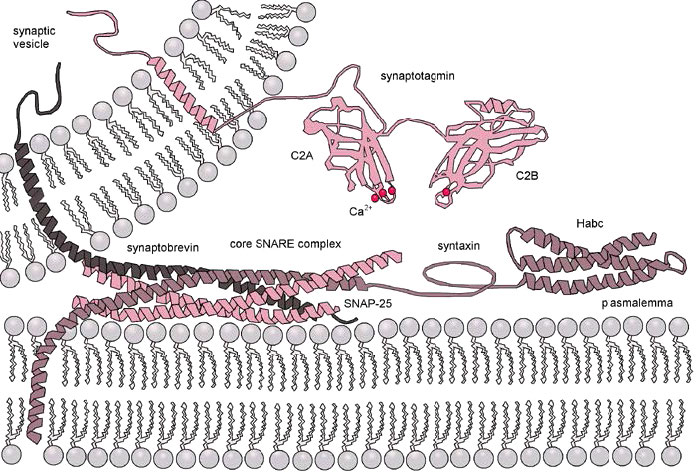
Пастки зустрічаються в двох місцях: V-образні пастки знаходяться в мембранах транспортних бульбашок під час процесу бутонізації, тоді як Т-пастки можна знайти в мембранах цільових відсіків.
Акт злиття бульбашок збігається зі збільшенням внутрішньоклітинного кальцію. Злиття синаптичних бульбашок при нейротрансмісії призводить до активації залежних від напруги кальцієвих каналів в клітині-цільовій клітині. Приплив кальцію сприяє стимулюванню злиття бульбашок. В ендокринній системі зв'язування гормонів з рецепторами, пов'язаними з білком G, активізують систему IP3/DAG для підвищення рівня кальцію.
В процесі злиття мембрани (рис. 3.62) V-пастки секреторного бульбашки (верхній лівий) взаємодіють з Т-пастками мембрани мішені (знизу). V- і T-пастки «застібки-блискавки» самі разом, щоб зблизити мембранну везикулу та мембрану цілі.
Блискавка також викликає сплющення та бічне натяг вигнутих поверхонь мембрани, сприяючи геміфузії зовнішніх шарів кожної мембрани. Постійне напруження призводить до подальшого злиття внутрішніх мембран, що дає відкриття вмісту бульбашкової камери до її мішені (як правило, поза клітиною).
Човники
Ще одним способом транспортування предметів через мембрану, для якої немає певної транспортної системи, є використання човників. Човники важливі, коли немає транспортного механізму для переміщення матеріалу через мембрану, для якої не існує транспортної системи.
Чудовим прикладом є NADH. НАДГ є важливим носієм електронів, який виробляється в цитоплазмі і мітохондріях клітини. NADH, що виробляється в мітохондріоні, надходить безпосередньо в електронну транспортну систему і доставляє електрони до комплексу I. NADH, що виробляється в цитоплазмі (наприклад, від гліколізу), не має такої можливості, оскільки внутрішня мембрана мітохондріона непроникна для молекули і не існує транспортера для переміщення його поперек. Важливою частиною NADH є його електронний вантаж, тому клітини розвинули два способи переміщення електронів в мітохондріальну матрицю крім NADH.
Обидва способи передбачають човники. У кожному випадку молекула акцептора отримує електрони від НАДГ і транспортується відновлена форма молекули акцептора. Він транспортується в матрицю, де окислюється (втрачаються електрони), а потім передається електронній транспортній системі.
Гліцерин фосфат човник
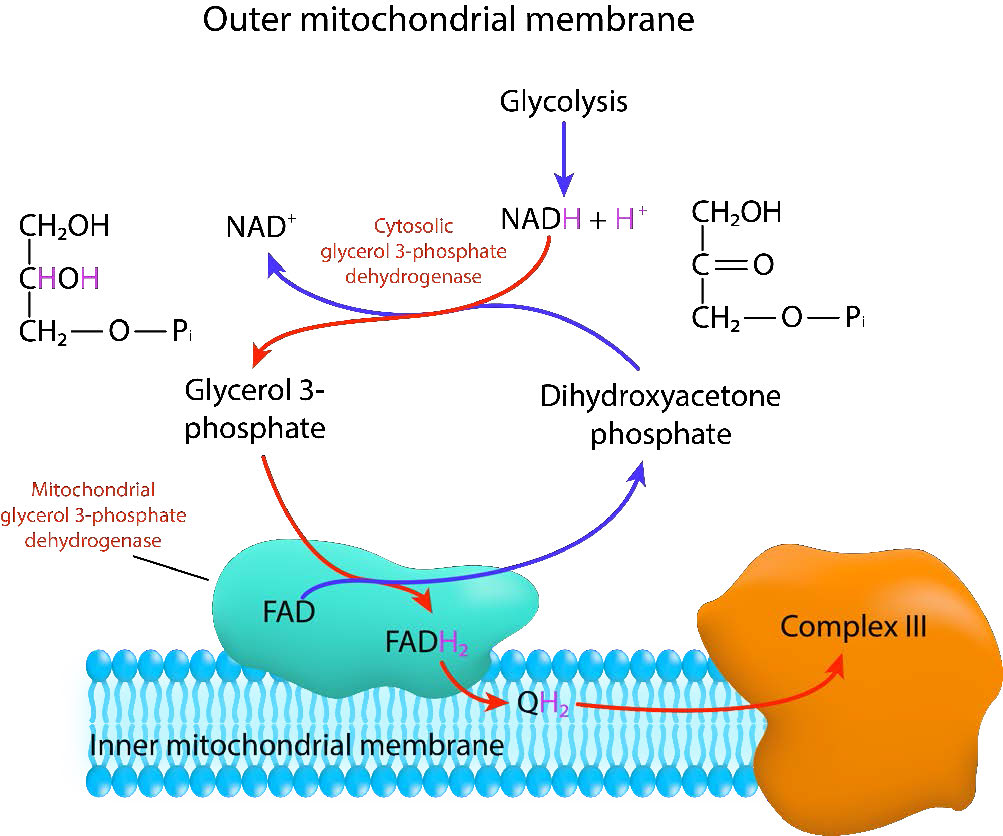
Перший з цих методів найменш ефективний, але він швидкий. Він часто зустрічається в м'язах, які мають потреби в швидкій енергії і тканини мозку. Цей човник називається човником фосфату гліцерину і показаний на малюнку 3.63. Діє в міжмембранному просторі між внутрішньою і зовнішньою мембранами мітохондрій. Зовнішня мембрана мітохондрій дуже пориста, що дозволяє багатьом матеріалам вільно проходити крізь неї. У міжмембранному просторі цитоплазматичний фермент, гліцеральдегід-3-фосфатдегідрогеназа (cGPd) каталізує перенесення електронів від НАДГ до дигідроксиацетону фосфату (#2 на малюнку), отримуючи НАД+ і гліцеральдегід-3-фосфат (#1 на малюнку). Потім гліцеральдегід-3-фосфат зв'язується з гліцеральдегід-3-фосфатдегідрогеназою (MgPd), вбудованою у зовнішню частину внутрішньої мітохондріальної мембрани. mGpD каталізує перенесення електронів від гліцеральдегід-3-фосфату до FAD, виробляючи дигідроксіацетон фосфат і FADH2. Потім FADH2 передає свої електрони в електронну транспортну систему через CoQ (Q вище), утворюючи CoQH2 (QH2 вище). Як буде розглянуто в розділі про перенесення електронів, це не ефективна система човника, оскільки вона не призводить до виробництва стільки АТФ, скільки відбувається, коли електрони передаються на NAD + замість FAD.
Малат-аспартат човник
Більш ефективною системою перенесення електронів є малатно-аспартатний човник і він показаний на малюнку 3.64. Як видно на малюнку, цей човник включає більше кроків, ніж човник фосфату гліцерину, але перевага човника з малат-аспартатом полягає в тому, що він є більш ефективним. NADH зовні мітохондріона передає свої електрони човнику, а потім NADH повторно робиться на внутрішній стороні човника. Ніякої енергії в процесі не витрачається.
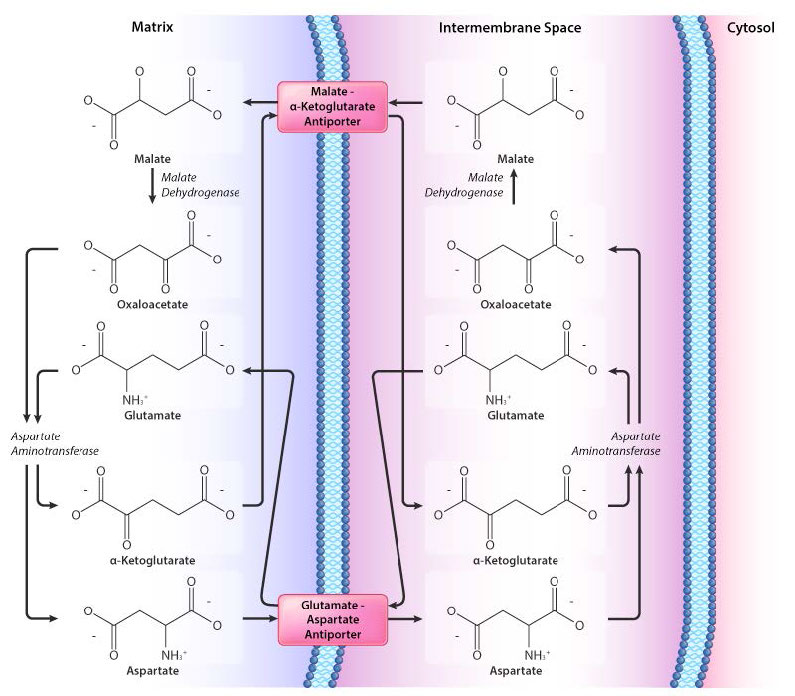
Коли NADH накопичується в цитоплазмі, він переміщається в міжмембранний простір, де фермент малатдегідрогеназа каталізує перенесення електронів в оксалоацетат з отриманням NAD + і малата. Транспортна система для малату переміщує малат в мітохондріальний матрикс в обмін на α-кетоглутарат.
Усередині мітохондріона малат окислюється до оксалоацетату, а електрони передаються NAD + для відтворення NADH. Потім NADH дарує електрони Комплексу I транспортної системи електронів. Ось дійсно все, що є до човника. Решта етапи - просто збалансувати рівняння процесу. Оксалоацетат приймає амінну групу з глутамінової кислоти для отримання аспарагінової кислоти та α-кетоглутарату. Потім аспартат виходить з мітохондріона через антипортовий транспортний білок, який замінює його на глутамат. Ряд реакцій в міжмембранному просторі врівноважує рівняння.
Легко загубитися в безладді рівнянь балансування. Найголовніше, що слід зрозуміти тут, це те, що оксалоацетат приймає електрони зовні, щоб стати малатом, який є носієм електронів через мембрану. Потрапивши всередину матриці, малат перетворюється назад в оксалоацетат, а його електрони передаються NAD +, утворюючи NADH. Все інше - просте рівняння балансування.
Ацетил-КоА човник
Інший вид човника також включає мітохондріон, і в цьому випадку елемент, що переміщується, - це молекула, а не пара електронів. Цікавою тут молекулою є ацетил-КоА, для якого не працює жодна транспортна система, але яка потрібна в цитоплазмі для синтезу жирних кислот, коли клітина має рясну енергію.
Ацетил-КоА в основному знаходиться в мітохондріоні і до тих пір, поки цикл лимонної кислоти працює ефективно, його концентрація відносно стабільна. Однак, коли цикл лимонної кислоти сповільнюється, ацетил-КоА і виготовлений з неї цитрат в циклі починають накопичуватися.
Мембранна транспортна система цитрату існує, тому він переміщується в цитоплазму. У цитоплазмі фермент, відомий як цитрат-ліаза, розщеплює цитрат до ацетил-КоА та оксалоацетату. Оксалоацетат може бути зменшений до малата і переміщений назад в мітохондріон.
Що стосується ацетил-КоА, то чим більше цього клітин має в цитоплазмі, тим більша ймовірність того, що вони почнуть робити жирні кислоти і жир, оскільки ацетил-КоА є вихідним матеріалом для синтезу жирних кислот, який відбувається в цитоплазмі. Коли відбувається цей процес? Як зазначалося вище, це відбувається, коли цикл лимонної кислоти припиняється, і це відбувається при підвищенні рівнів NADH і FADH2. Вони, звичайно, збільшуються, коли хтось не спалює стільки калорій, скільки споживає як побічний продукт дихального контролю. Відсутність фізичних вправ призводить до більш високого рівня знижених носіїв електронів.
З'єднання клітин
Клітини в багатоклітинних організмах знаходяться в тісному контакті один з одним і зв'язки між ними називаються переходами. У хребетних організмах існує три основних типи клітинних з'єднань, і один з них (розривні з'єднання) важливий для переміщення матеріалів між клітинами. Три типи:
- Розрив стиків
- Причіпні з'єднання, (анкерні з'єднання, десмосоми та гемідесмосоми)
- щільні місця з'єднання
Клітинні з'єднання у багатоклітинних рослин структуровані інакше, ніж у хребетних, і називаються плазмодезматами. Вони теж функціонують в обміні матеріалами між окремими клітинами.
Розрив стиків
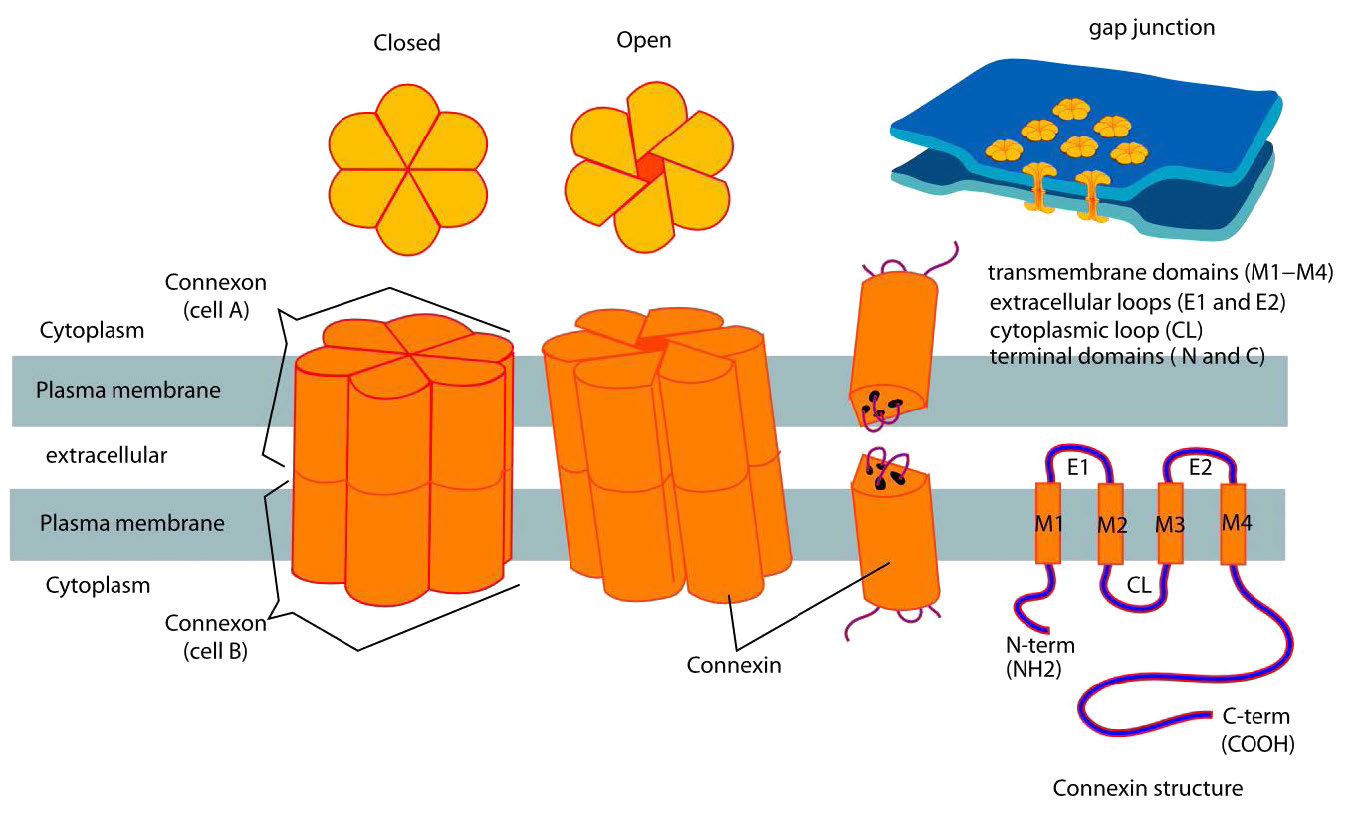
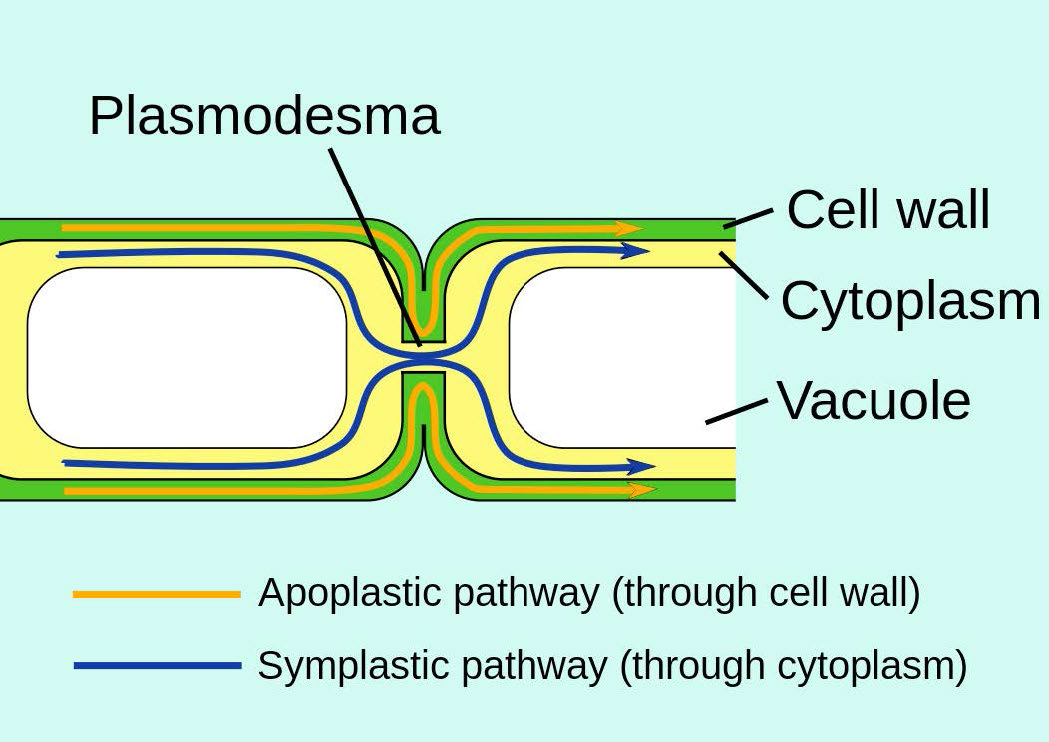
Розривні з'єднання - це спеціалізовані структури, що складаються з двох наборів структур, званих коннексонами (по одному з кожної клітини - див. Рис. 3.65), безпосередньо пов'язують цитоплазми з'єднаних клітин. Зазорні переходи регулюються для управління потоком молекул, іонів та електричних імпульсів між клітинами. У рослин подібні структури, відомі як плазмодезмати, проходять клітинну стінку (рис. 3.66) і виконують аналогічні функції.
Прихильники стиків
Адеренсні з'єднання (рис. 3.67) - це білкові комплекси на цитоплазматичної стороні клітинних мембран епітеліальних і ендотеліальних тканин, які пов'язують клітини один з одним або з позаклітинним матриксом. Вони відповідають адгеренам фасції, виявленим в неепітеліальних/неендотеліальних клітині.
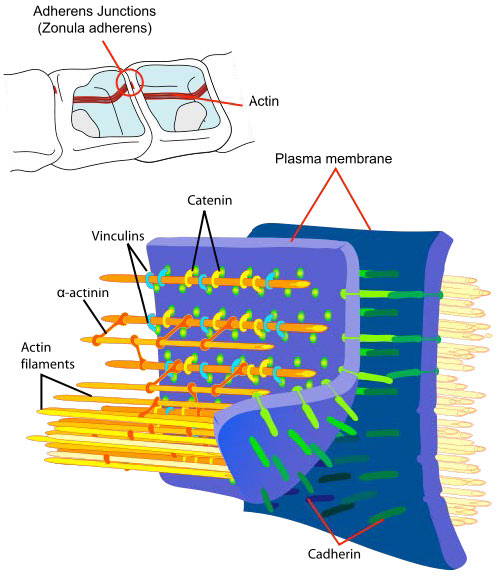
Адгеренні з'єднання містять наступні білки - 1) α-катенін (зв'язує кадерин через β-катенін); 2) β-катенін (приєднання для α-катеніну до кадгерину; 3) γ-катенін (зв'язується з кадерином); 4) кадгерини (група трансмембранних білків, що димеризуються з кадеринами на сусідніх клітині; 5) р120 (також називається Δ-катеніном - зв'язується з кадерином); 6) плакоглобін (білок сімейства катенінів, гомологічний і діє як β-катенін); 7) актин; 8) актинін; і 9) вінкулін. Причіпні з'єднання можуть сприяти підтримці актинового скоротливого кільця, яке утворюється в процесі цитокінезу.
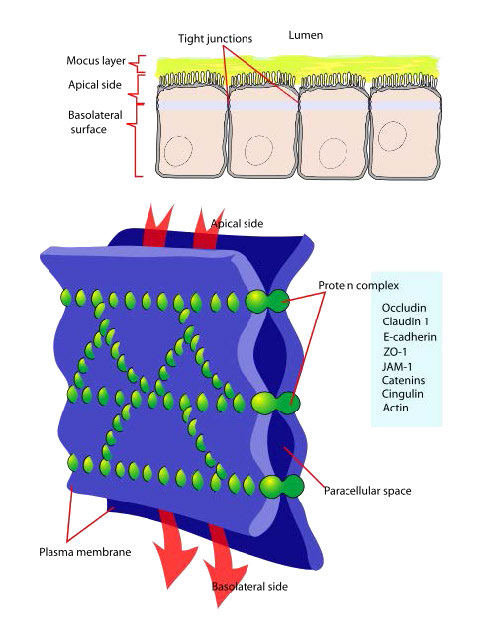
щільні місця з'єднання
Тугі з'єднання (рис. 3.68) являють собою мережу білкових ниток, які скріплюють клітини між собою і обмежують потік іонів в проміжках між ними. Ефект їх структури полягає в обмеженні руху матеріалів через тканини, вимагаючи від них проходження крізь клітини, а не навколо них. Тугі з'єднання з'єднують між собою цитоскелети клітин і через їх структуру підтримують їх верхівкову і базолатеральную полярність.
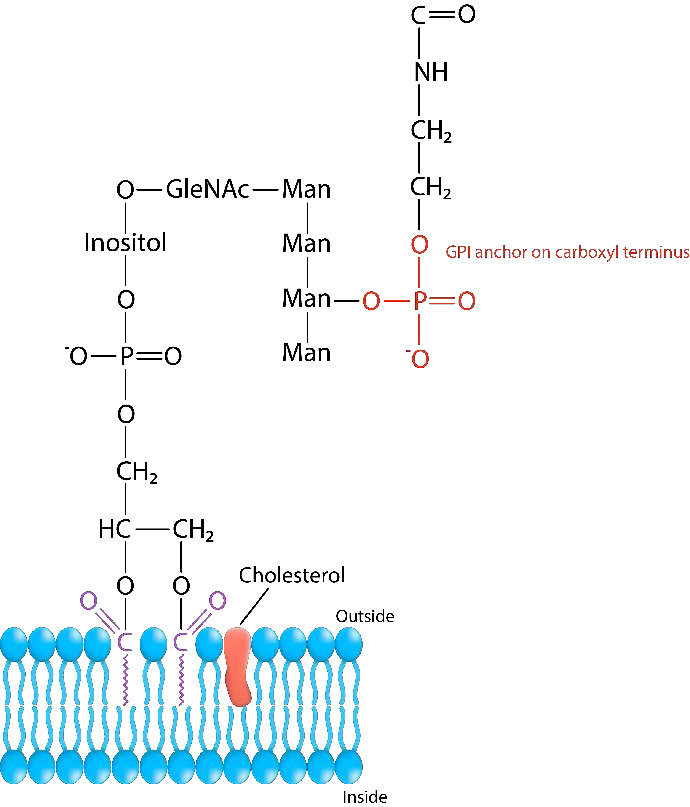
Анкери GPI
Мембранні білки, прикріплені до глікозилфосфатидилінозитолу (також відомого як якоря GPI), називаються гліпійованими. Білки, які відіграють важливу роль у багатьох біохімічних процесах, прикріплюються до якоря GPI на їх карбоксильних кінцях. Фосфоліпази, такі як фосфоліпаза С, можуть розрізати зв'язок між білком і GPI, звільняючи білок від зовнішньої клітинної мембрани. Білки, яким судилося гліпіювати, мають дві послідовності сигналів. Вони являють собою 1) Послідовність сигналу N-терміналу та 2) Послідовність сигналу C-терміналу, яка розпізнається транзамідазою GPI (GPIT). Послідовності N-кінцевих сигналів відповідають за направлення спільного трансляційного транспорту в ендоплазматичний ретикулум. C-кінцева послідовність розпізнається транзамідазою GPI, яка пов'язує карбоксичний кінець білка з якорем GPI.
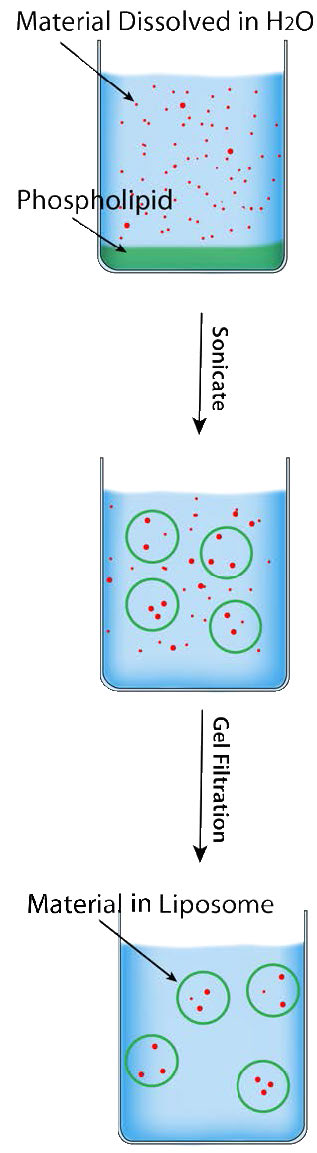
Ліпосоми
Спонтанна здатність фосфогліцероліпідних і сфінголіпідних сполук утворювати ліпідні бішари використовується при формуванні штучних мембранозних структур, званих ліпосомами (рис. 3.69). Ліпосоми корисні для доставки їх вмісту в клітини за допомогою мембранного злиття. На малюнку предмети, призначені для доставки до клітин, будуть укладені в середню кругову область ліпосоми, і коли ліпосома зливається з клітинною мембраною, вона буде доставляти вміст безпосередньо в цитоплазму.
Індекс гідропатії
Внутрішня частина ліпідного бішару дуже гідрофобна, що робить його дуже обмежуючим для руху іонів і полярних речовин по ньому. Ця властивість також встановлює обмеження на типи амінокислот, які будуть взаємодіяти з ним, а також. Через це трансмембранні білкові домени, знайдені в інтегральних мембранних білках, зміщені в амінокислотах, які взаємодіють або з ліпідним бішаром, або з водним матеріалом по обидва боки від нього.
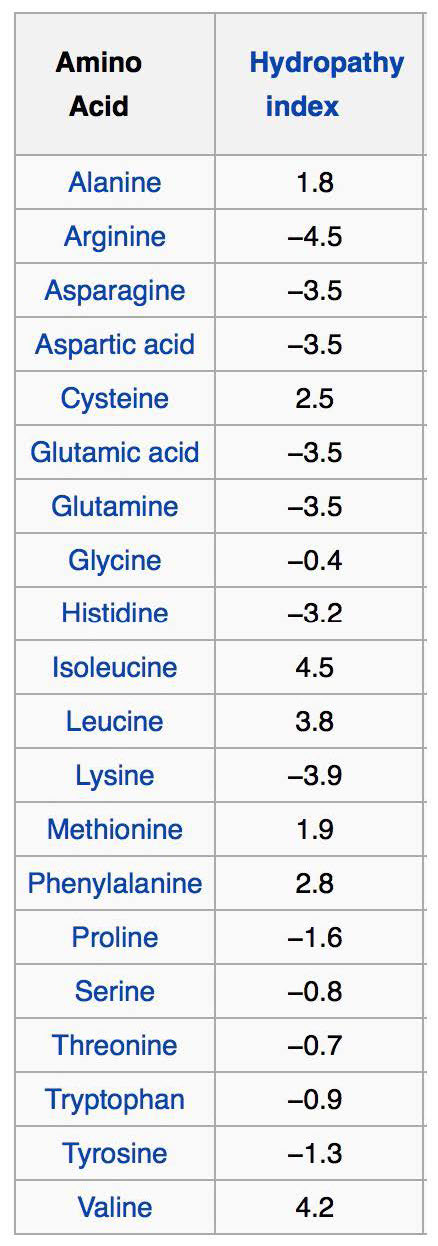
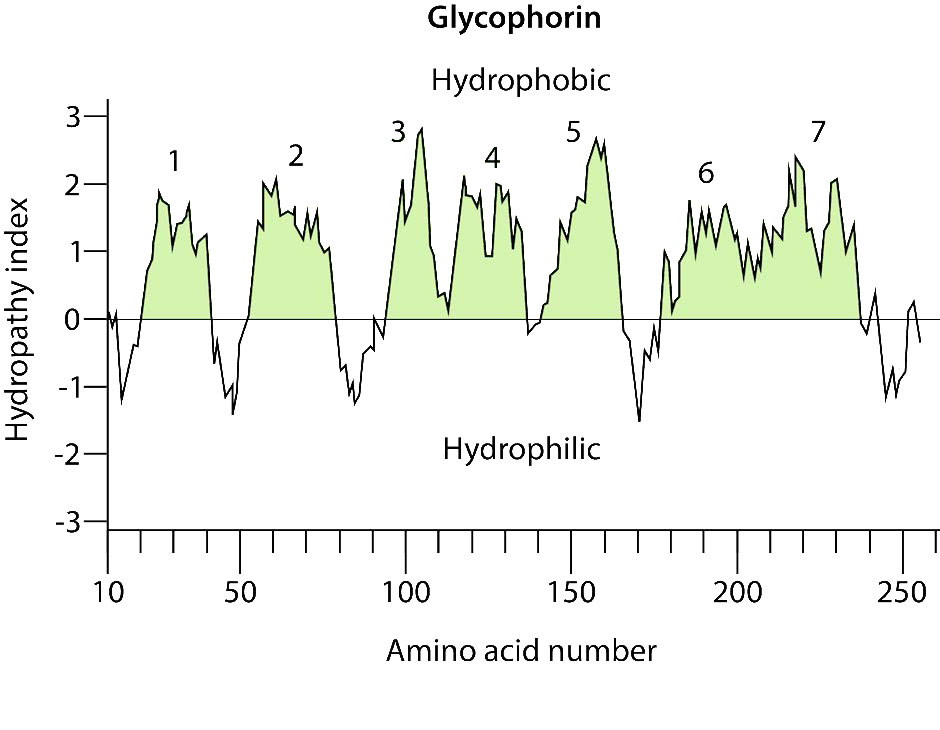
Гідрофобні амінокислоти знаходяться в бішарі, тоді як гідрофільні амінокислоти знаходяться переважно на поверхнях. Додатковою підказкою до виявлення областей, що перетинають мембрану білка, є те, що триптофан або тирозин зазвичай розташовуються на неполярному/полярному інтерфейсі (ах) ліпідного бішару для інтегральних білків. Таку організацію амінокислот можна розпізнати за допомогою комп'ютерного аналізу амінокислотних послідовностей з використанням так званого індекса/оцінки гідропатії (рис. 3.71). Хоча назви та оцінки різняться, ідея полягає в тому, щоб призначити число (як правило, позитивне) амінокислотним бічним ланцюгам з вищою гідрофобністю і негативним до тих, які є іонними. За допомогою цих балів комп'ютерна програма може легко знайти середні бали коротких сегментів амінокислот (скажімо, 3 амінокислоти довго), а потім побудувати ці значення на графіку індексу гідрофобності проти положення в поліпептидному ланцюзі. Роблячи це для трансмембранного білка, такого як глікофорин, призводить до графіка, показаного на малюнку 3.72. В аналізі видно, що це трансмембранний білок, який має сім доменів, що перетинають ліпідний бішар, як мічений.
клітинні стінки
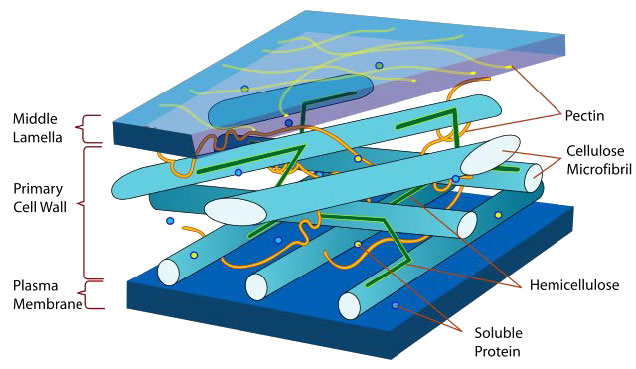
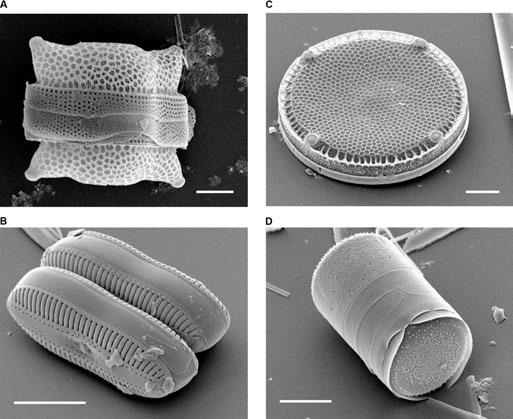
Клітинні стінки знаходяться в багатьох клітині, включаючи рослини, гриби та бактерії, але не містяться в клітині тварин. Вони призначені для забезпечення міцності і цілісності і хоча б деякого захисту від розриву від осмотичного тиску (рис. 3.73-3.75).
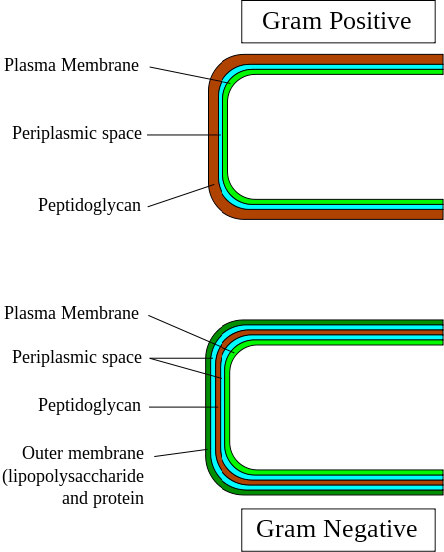
Грамопозитивні бактерії (рис. 3.75) мають найпростішу конструкцію клітинної стінки. Рухаючись ззовні клітини до цитоплазми, відбувається зовнішній пептидоглікановий шар для клітинної стінки, за яким слідують периплазматичний простір, плазматична мембрана, а потім цитоплазма. Грамонегативні бактерії додають другий захисний шар, зовнішній до всього цього, тому для них, починаючи зовні і рухаючись всередину, стикаються з зовнішнім шаром ліпополісахариду, периплазматичним простором, клітинною стінкою пептидоглікану, другим периплазматичним простором, плазматичною мембраною, а потім цитоплазмою.
Трав'янисті рослини мають жорстку зовнішню клітинну стінку (в основному складається з целюлози, геміцелюлози та пектину) і внутрішню плазматичну мембрану. Деревні рослини додають другий рівень стінки з лігніном між целюлозною стінкою і плазматичною мембраною трав'янистих рослин.
BB Країна чудес
На мелодію «Зимова країна чудес»
Метаболічні мелодії Сайт ТУТ
Мілам Холл - Це 12:30
І Агерн стає жалюгідним
Він ходить туди і з'
Поки не розмовляти' повільно
Даючи його Б-4-5-0
Я був щасливий, коли термін розпочався
Конспекти лекцій та відео в достатку
MP3 отримав доданий до мого iPod
Але декламації іноді були занудою
І іспити укусив мене грубо
Коли крива вийшла некрасивою
Я не думаю, що це так
Мої оцінки занадто низькі
Розсувні в Б-4-5-0
Нарешті, є експертиза
9 грудня о 18:00
У мене буде моя картка упакована з інформацією
Тож мені не потрібно запам'ятовувати його тоді
І я відчую себе розумним
З моїм джем упаковані нотатки-карти
Лише ще один, щоб піти
А потім хо-хо-хо
Я зроблю з Б-Б-4-5-0
Запис Девіда Сіммонса
Тексти пісень Кевіна Ahern
Запис Девіда Сіммонса Тексти пісень Кевіна Ahern
334
Слава Богу, є відео
На мелодію «Слава Богу, я сільський хлопчик»
Метаболічні мелодії Сайт ТУТ
Там є пакет речей, які студент повинен знати
І розмова Ahern насправді не дуже повільна
Learnin' не легко/лекції свого роду удар
Слава Богу, є відео
Ну, ми пройшли цикли і їх ферменти теж
Вивчаючи регулювання, все нове
, я повинен визнати, що я не маю поняття
Що я збираюся робити?
Тож я отримав мені записну картку і купив мені Stryer
Отримав ферменти вниз і імена, які він вимагає,
я сподіваюся, що я зможу зібрати трохи більше бажання
Слава Богу, є відео
Щойно піднявся на швидкість про N-A-D
протони, що рухаються через комплекс Vee
Electrons танцюють у цитохромі C
, Потрібно почути MP3
Окислення жирних кислот робить ацетил-КоА
Усередині внутрішньої матриці мітохондрій-ай
Це дуже складно, я думаю, я повинен сказати
Слава Богу, є відео
Тож я отримав мені записну картку і купив мені Stryer
Отримав ферменти вниз і імена, які він вимагає,
я сподіваюся, що я зможу зібрати трохи більше бажання
Слава Богу, є відео
Реплікація свого роду легко в простий спосіб
Копіювання основ в плазмідних DNA
Gs йде з Cs і Ts йдуть з як
завдяки полімеразі.
І ДНК - це шаблон для розмотування
спіралей РНК при
припиненні T-A-T-A, тоді фермент відходить
Не забувайте про полі-А
Тож я отримав мені записну картку і купив мені Stryer
Отримав ферменти вниз і імена, які він вимагає,
я думаю, що я можу зібрати трохи більше бажання
Слава Богу, є відео
Запис Девіда Сіммонса
Тексти пісень Кевіна Ahern
Запис Девіда Сіммонса Тексти пісень Кевіна Ahern