
3.2: Транспорт в мембранах
- Page ID
- 2551
Джерело: BiochemFFA_3_2.pdf. Весь підручник доступний безкоштовно від авторів за адресою http://biochem.science.oregonstate.edu/content/biochemistry-free-and-easy
Переміщення матеріалів по мембранах
Як зазначалося раніше, клітинам важливо мати можливість засвоювати поживні речовини. Ця функція поряд з рухом іонів та інших речовин забезпечується білками/білковими комплексами, які є високоспецифічними для сполук, які вони рухаються.
Селективний рух іонів мембранними білками і надзвичайно низька проникність іонів через ліпідний бішар важливі для підтримки осмотичного балансу клітини, а також для забезпечення найважливішого механізму для її створення АТФ - процесу окислювального фосфорилювання.
Термінологія
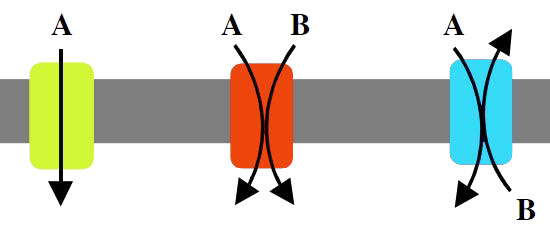
Білок, який бере участь в переміщенні тільки однієї молекули по мембрані, називається уніпортом (рис. 3.25). Білки, які рухаються дві молекули в одному напрямку по мембрані, називаються симпортами (також називаються синпортерами, синпортами або симпорттерами). Якщо дві молекули переміщаються в протилежних напрямках через бішар, білок називається антипортом. Білки, які беруть участь в русі іонів, називаються іонофорами.
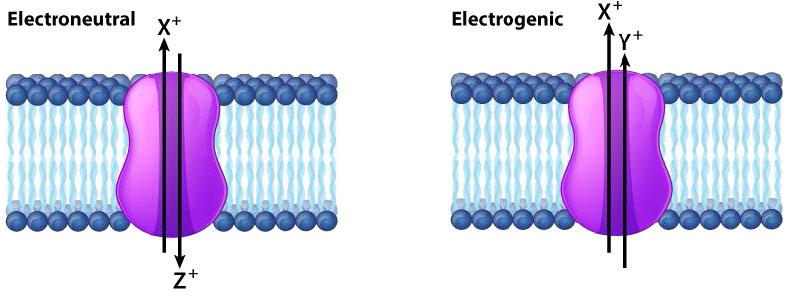
Якщо дія білка в рухомих іонів через мембрану призводить до чистої зміни заряду, білок описується як електрогенний, а якщо немає зміни заряду, білок описується як електронно-нейтральний (рис. 3.26). Коли рушійною силою руху через мембранний білок є просто дифузія, процес називається полегшеною дифузією або пасивним транспортом, а коли процес вимагає іншого введення енергії, процес називається активним транспортом.
Канали і транспортери
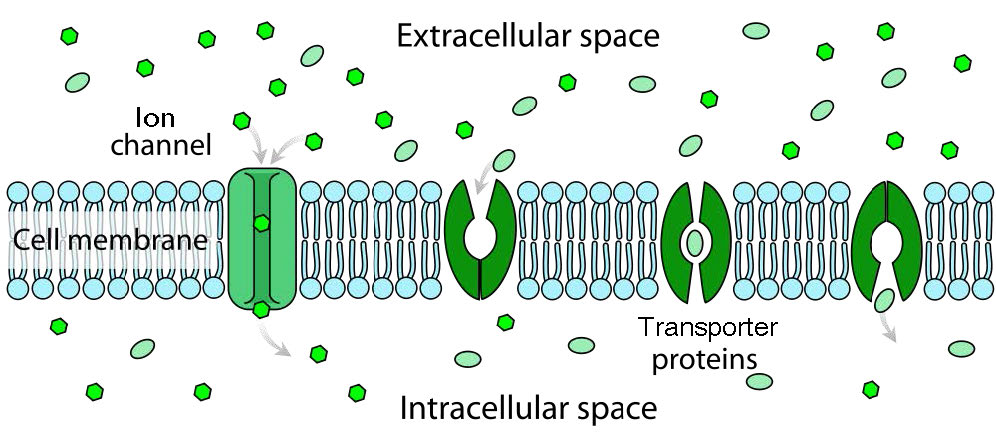
Що стосується руху матеріалів через мембранні білки, то існує різниця між каналами (іноді їх називають порами) і транспортерами. Канали багато в чому забезпечують отвори з деякою специфічністю і молекули проходять через них з близькою до швидкості дифузії. Зазвичай вони передбачають рух води або іонів. Прикладами можуть бути натрієві або калієві канали нервових клітин. Транспортери мають високу специфічність і швидкість передачі, які на порядок повільніше. Транспортні білки включають натрієво-калієвий насос, натрієво-кальцієвий обмінник та пермеазу лактози, серед багатьох інших).
Полегшена дифузія
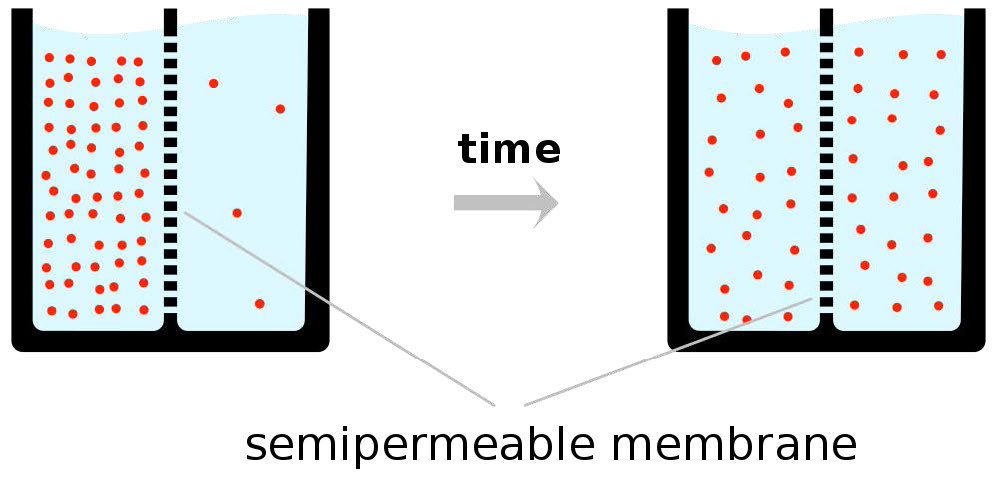
Як зазначалося, рушійною силою полегшеної дифузії є концентрація, що означає, що при полегшеній дифузії матеріали будуть переходити лише від більш високої концентрації до нижчої концентрації і що в кінці процесу концентрація матеріалів з кожного боку бішару буде рівною (рис. 3.28). Це може добре працювати в багатьох випадках.
Наприклад, концентрація глюкози в крові досить висока, що еритроцити можуть використовувати полегшену дифузію як засіб придбання глюкози. Інші клітини, додатково видалені з кровопостачання, де концентрація глюкози нижча, повинні використовувати активні транспортні механізми, оскільки не існує достатньої концентрації глюкози для забезпечення клітин необхідною їм глюкозою.
Іонні канали
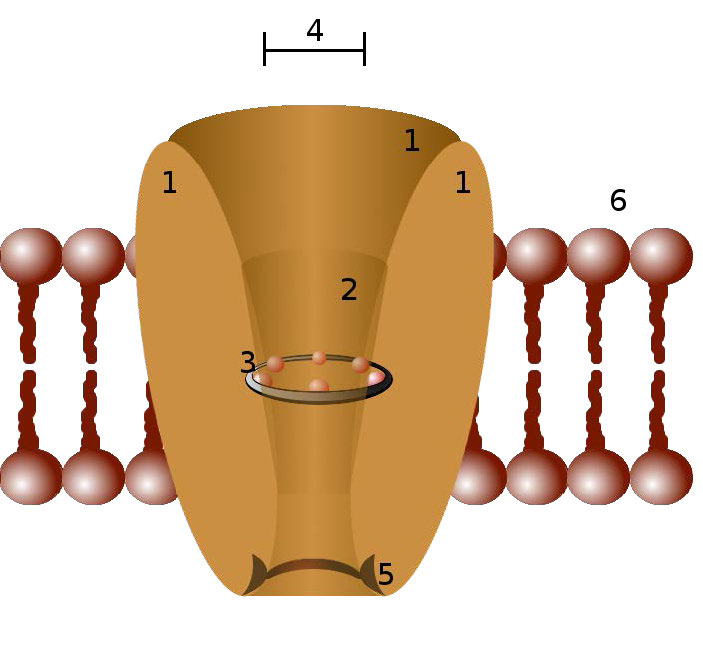
Іонні канали - це порообразующие мембранні білки в мембранах всіх клітин, які регулюють рух відібраних іонів через мембрану (рис. 3.29 & 3.30). Вони допомагають встановити потенціал спокою мембрани та впливати на потенціали дії та інші електричні сигнали. Вони дуже важливі в процесі нервової передачі. Іонні канали контролюють потік іонів через секреторні та епітеліальні клітини, а отже, допомагають регулювати об'єм клітин, впливаючи на осмотичний тиск.
Іонні канали є істотними ознаками майже всіх клітин, функціонуючи як селективні «тунелі», які обмежують рух по ним іонів зі специфічними характеристиками (типово розміром). Розмір отвору дуже вузький (зазвичай шириною один або два атома) і здатний вибирати навіть проти занадто малих іонів.
механізми управління
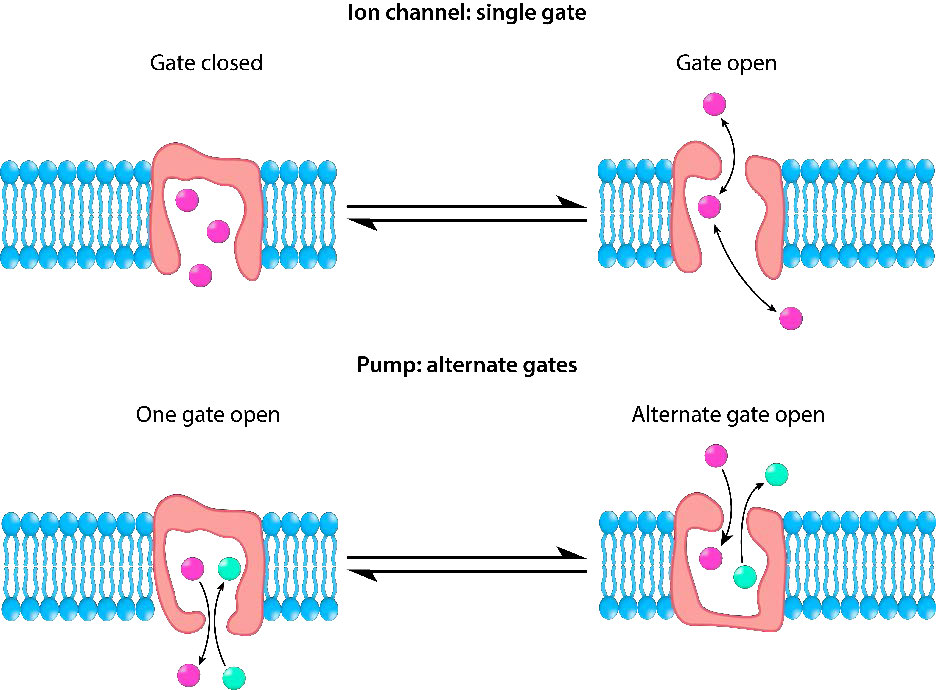
Іонні канали контролюються механізмами, що включають напругу, ліганди, світло, температуру та механічну деформацію (розтягування активується). Ліганд-іонні канали (LGIC) - це трансмембранні білки, які відкриваються, щоб вибірково дозволити іонам, таким як Na+, K+, Ca++ або Cl− проходити через мембрану у відповідь на зв'язування лігандного месенджера.
Звукові хвилі викликають механічну деформацію волосяних клітин у вусі. Це призводить до відкриття іонних каналів і ініціювання нервового сигналу в мозок.
Натрієві іонні канали на мові для рецепторів цукру відкриваються у відповідь на зв'язування сахарози, дозволяючи концентрації натрію в нервовій клітині збільшуватися і ініціювати нервовий сигнал мозку. У цьому випадку за замовчуванням для воріт повинен бути закритий і він відкривається у відповідь на зв'язування ліганду (сахарози).
У світлочутливих клітині ока кальцієві ворота за замовчуванням відкриті, але стимуляція світлом змушує їх закриватися, викликаючи низку подій, які призводять до того, що мозок надсилає сигнал про сприйняття світла. Таким чином, в цьому випадку подразник (світло) викликає закриття відкритого каналу.
Рухаючись в інший бік, нервові сигнали, що відбуваються в мозку, переміщаються в м'язову тканину і через складний набір обмінів призводять до відкриття кальцієвих воріт м'язових клітин, збільшуючи концентрацію кальцію і стимулюючи м'язове скорочення (див. ТУТ).
Напруга закритих каналів є важливими для передачі нервових сигналів, процес обговорюється більш глибоко ТУТ.
Рух іонів по каналах
Здатність іонних каналів вибирати проти занадто великих іонів інтуїтивно зрозуміла - розмір отвору в іонному каналі просто недостатньо великий, щоб більший іон помістився через отвір. Калій, наприклад, проходить через натрієві канали рідко, оскільки отвір занадто мале.
Калієві канали, які є селективними для іонів калію, повинні бути достатньо великими, щоб дозволити калію потрапляти, але якби розмір був єдиним засобом відбору, то іони натрію також легко проходили б через калієві канали, оскільки іони натрію (0,95 Å) менші, ніж іони калію (1,33 Å). Для того, щоб калієві канали вибирали проти іонів натрію та сприяли іонам калію, інші міркування вступають у гру.
Гідратація оболонки
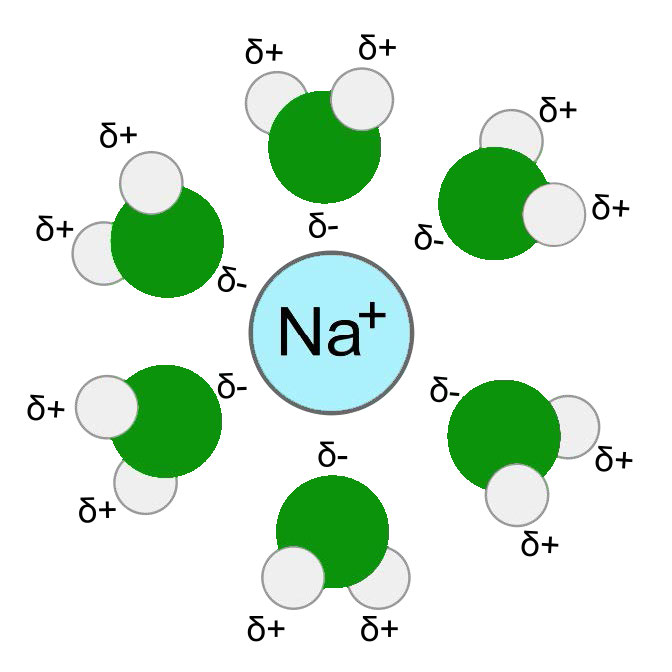
Щоб зрозуміти цю унікальну вибірковість, важливо зрозуміти, як іони рухаються по каналах. Перш ніж іон зможе пройти через канал, його спочатку потрібно дисоціювати від (позбавити) молекул води в його гідратаційній оболонці - молекул води, що оточують іони у водних розчині (рис. 3.32). Цей процес вимагає введення енергії. Початкова енергія, необхідна для видалення молекул води з гідратаційної оболонки, порівнюється з енергією активації ферментативної реакції.
Порівняно з ферментами
Подібно до того, як ферменти знижують енергію активації ферментативних реакцій і, таким чином, дозволяють їм легше відбуватися, так і білки каналів знижують енергетичні потреби молекули для проходження ліпідного бішару. За відсутності білка каналу енергія зневоднення в основному є заборонною для більшості полярних молекул, тому дуже мало хто робить його через ліпідний бішар без білка каналу. Ось чому білки іонного каналу/транспорту так важливі для клітини.
Після того, як вода була зачищена, іон може пройти через канал, і коли він надходить на іншу сторону каналу, дифузійний іон стає регідратованим, таким чином повертаючи енергію, необхідну спочатку для видалення молекул води від іона.
Селективність калієвого каналу
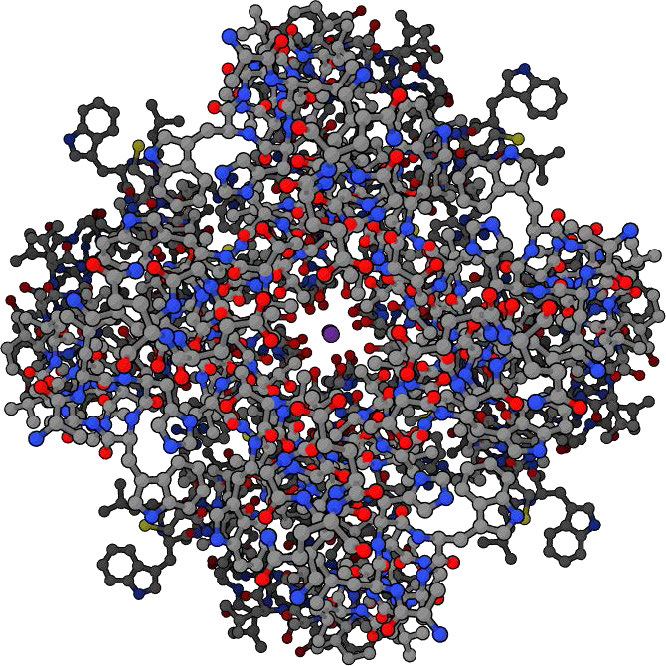
Калієвий канал (рис. 3.33) використовує розміри іона калію саме для того, щоб провітрити його через канал. Іон натрію, який має різні розміри, має складніший час, щоб пройти через канал, незважаючи на менший розмір. Причина цього корениться в енергії, необхідної для зневоднення.
Для іонів калію після того, як вода була відчищена, точно розташовані карбонільні групи вздовж каналу допомагають стабілізувати іон під час його руху. Іон натрію, з іншого боку, занадто малий і не робить ефективних зв'язків з карбонільними групами і, таким чином, має більш складний шлях. Через це різниця в енергії між зневодненням і регідратацією іона натрію в калієвому каналі є енергетично несприятливою (вимагає чистого введення енергії), але той самий процес для іона калію енергетично сприятливий (призводить до чистого приросту енергії).
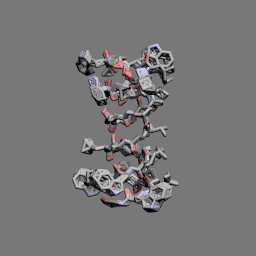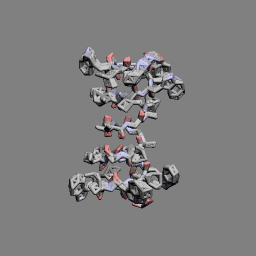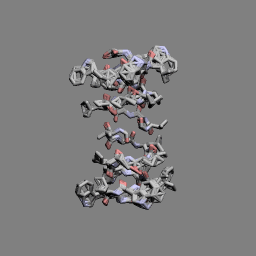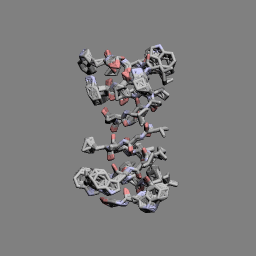
Фільм 3.1 - Граміцидин Вікіпедії (анімований GIF, завантажити для перегляду)
Енергетичний фактор
Таким чином, відбір на користь калію та проти іонів натрію в калієвому каналі ґрунтується на енергії, а не фізичному розмірі, тоді як при виборі іонів натрію над іонами калію в натрієвому каналі розмір є основним фактором.
Іонний баланс
Рух іонів через ліпідний бішар жорстко регулюється, і з поважною причиною. Підтримка належного балансу іонів всередині і зовні клітин важливо для підтримки осмотичного балансу. Це також важливо всередині і зовні органел, таких як мітохондрії та хлоропласти для вироблення енергії. Якщо іонний баланс клітини досить порушений неконтрольованим іонофором, клітина може загинути.
Граміцидин
Граміцидини (фільм 3.1) - це поліпептиди антибіотиків, синтезовані ґрунтовою бактерією, відомою як Bacillus brevis. Ці невеликі пентадекапептиди (15 амінокислот) синтезуються бактерією для знищення інших бактерій.
При вивільненні Bacillus brevis граміцидини вставляються в мембрани грампозитивних бактерій і дозволяють переміщати іони натрію в клітини-мішені, в кінцевому підсумку вбиваючи їх. Граміцидини також можуть викликати гемоліз у людей, тому їх не можна застосовувати внутрішньо, а замість цього використовуються місцево.
Аквапорін
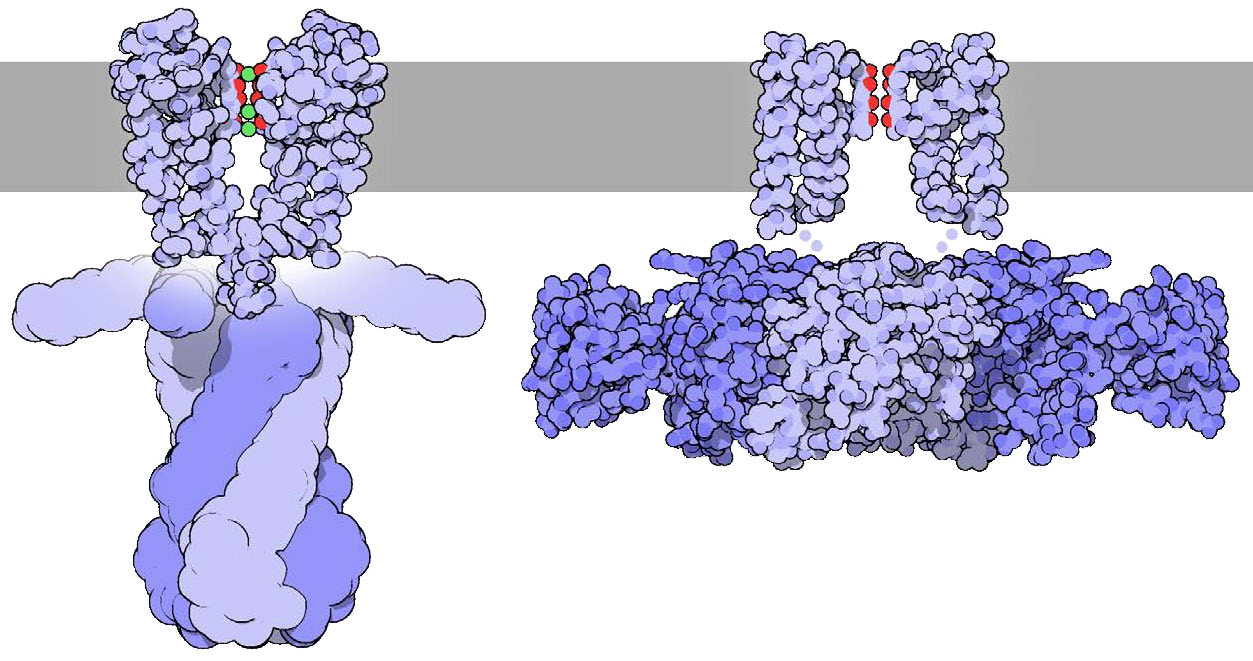
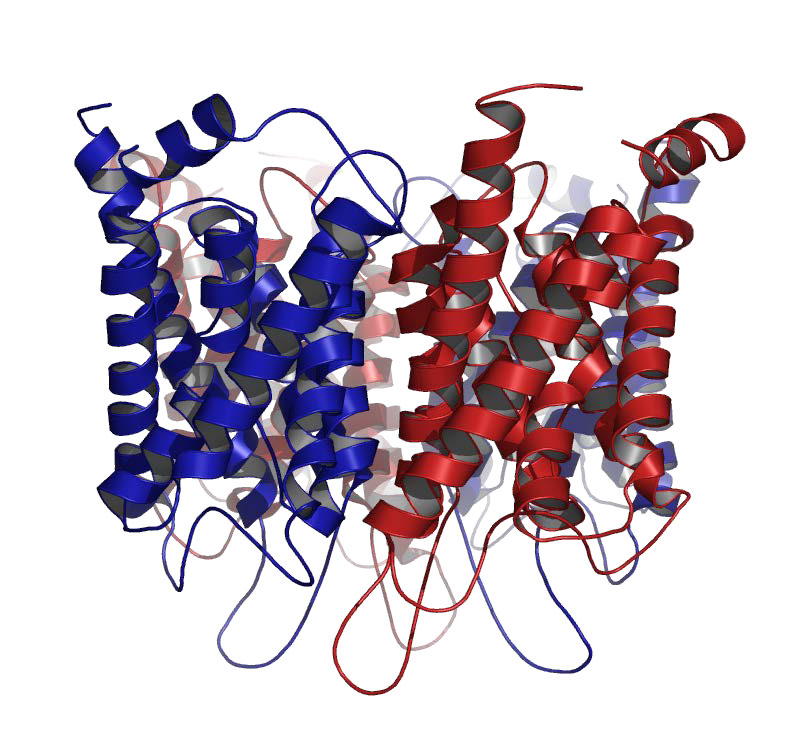
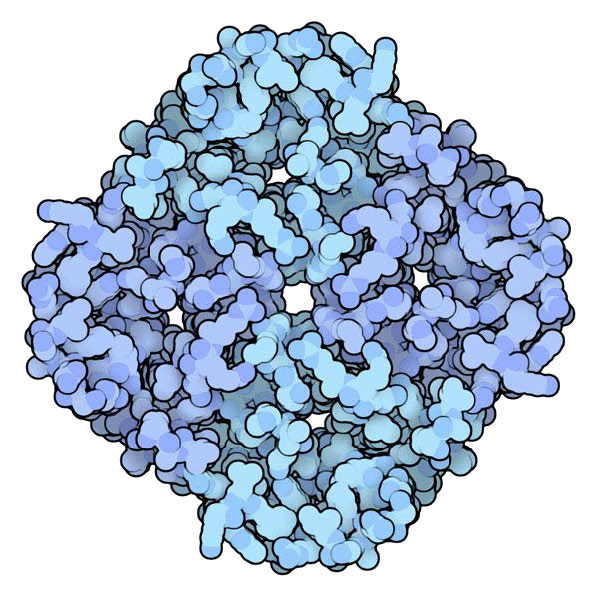
Аквапорини - це споривмісні інтегральні мембранні білки, які вибірково дозволяють проходити молекули води всередину і з клітини, запобігаючи переміщенню іонів та інших розчинених речовин (рис. 3.34 та 3.35). Деякі аквапорини, які називаються аквагліцеропоринами, також транспортують інші дрібні незаряджені речовини, такі як гліцерин, аміак, сечовина та CO2, через мембрану. Водні пори повністю непроникні для заряджених молекул, таких як протони, що важливо для збереження електрохімічної різниці потенціалів мембрани.
Порінс
Порини - це білки, що містять β-барельну структуру, яка перетинає клітинну мембрану/стінку і діє як пора/канал, через який дифузні конкретні молекули. Порини знаходяться у зовнішній мембрані грамнегативних бактерій та деяких грампозитивних бактерій, мітохондрій та хлоропластів.
Порини зазвичай транспортують лише одну групу молекул або, в деяких випадках, одну конкретну молекулу. Антибіотики, такі як β-лактам та фторхінолон, проходять через поріни, щоб досягти цитозолу грамнегативних бактерій. Бактерії можуть розвинути стійкість до цих антибіотиків, коли відбувається мутація до задіяного поріну, що призводить до виключення антибіотиків, які інакше пройшли б.
Транспортер білків
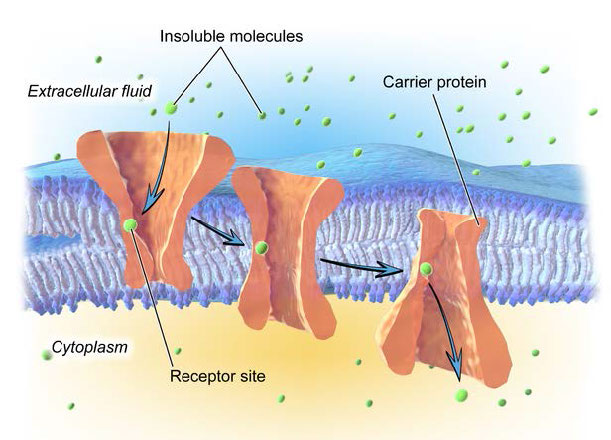
Не всі полегшені транспортування відбувається через іонний канал білків. Транспортерні білки, як зазначалося раніше (ТУТ і рис. 3.27) полегшують переміщення матеріалів через ліпідний бішар, але повільніше, ніж іонні канали. Малюнок 3.36 ілюструє білок транспортера в дії. Як видно, білки-транспортери покладаються на конкретний сайт рецептора для належного розпізнавання молекули, яку потрібно переміщати.
Зв'язування належної молекули спричиняє конформаційну зміну форми білка (вивертання), що призводить до перекидання відкритої сторони білка на іншу сторону ліпідного бішару. Таким чином відбувається переміщення молекули. Як і іонні канали, білки-транспортери полегшують рух матеріалів в будь-якому напрямку, керуючись лише різницею концентрацій між однією та іншою стороною.
Активний транспорт
Всі описані досі транспортні механізми керуються виключно градієнтом концентрації - рухаючись від більш високих концентрацій у напрямку нижчих концентрацій. Ці рухи можуть відбуватися в будь-якому напрямку і, як зазначалося, призводять до однакових концентрацій по обидва боки бішару, якщо дозволяють перейти до завершення. Однак багато разів клітини повинні переміщати матеріали проти градієнта концентрації, і коли це відбувається, потрібно інше джерело енергії. Цей процес відомий як активний транспорт.
Хорошим визначенням активного транспорту є те, що при активному транспорті принаймні одна молекула рухається проти градієнта концентрації. Поширеним, але не виключним джерелом енергії є АТФ (див. Na+/K+ATPase), але використовуються і інші джерела енергії. Наприклад, транспортер натрій-глюкоза використовує градієнт натрію як силу для активного транспортування глюкози в клітину. Таким чином, важливо знати, що не весь активний транспорт використовує енергію АТФ.
Na+/K + АТ-фаза
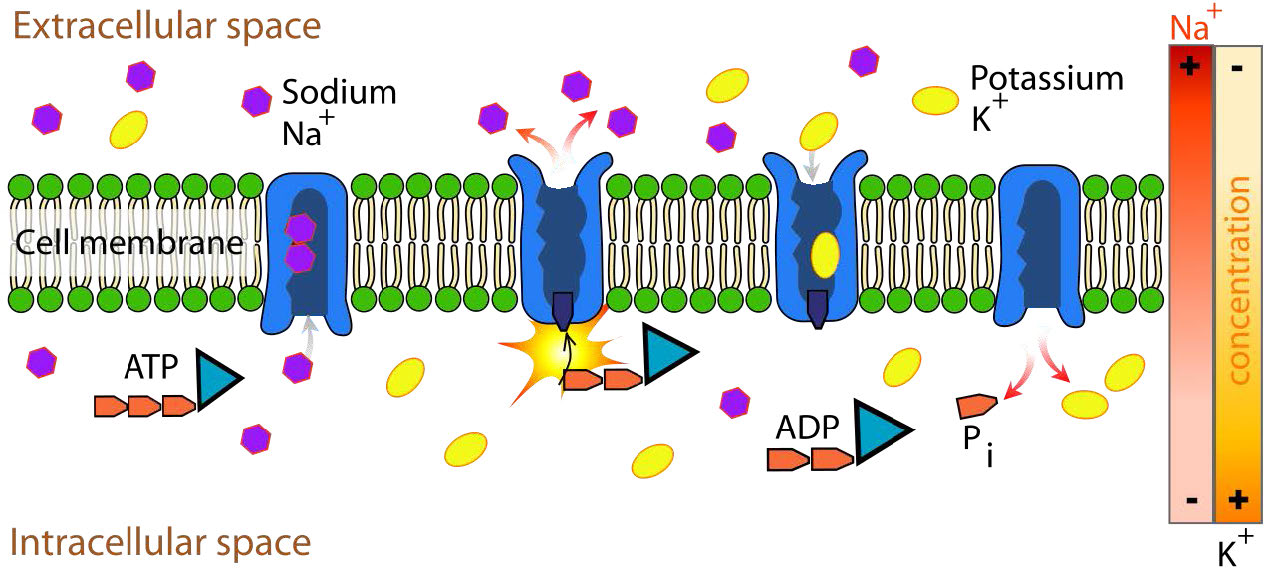
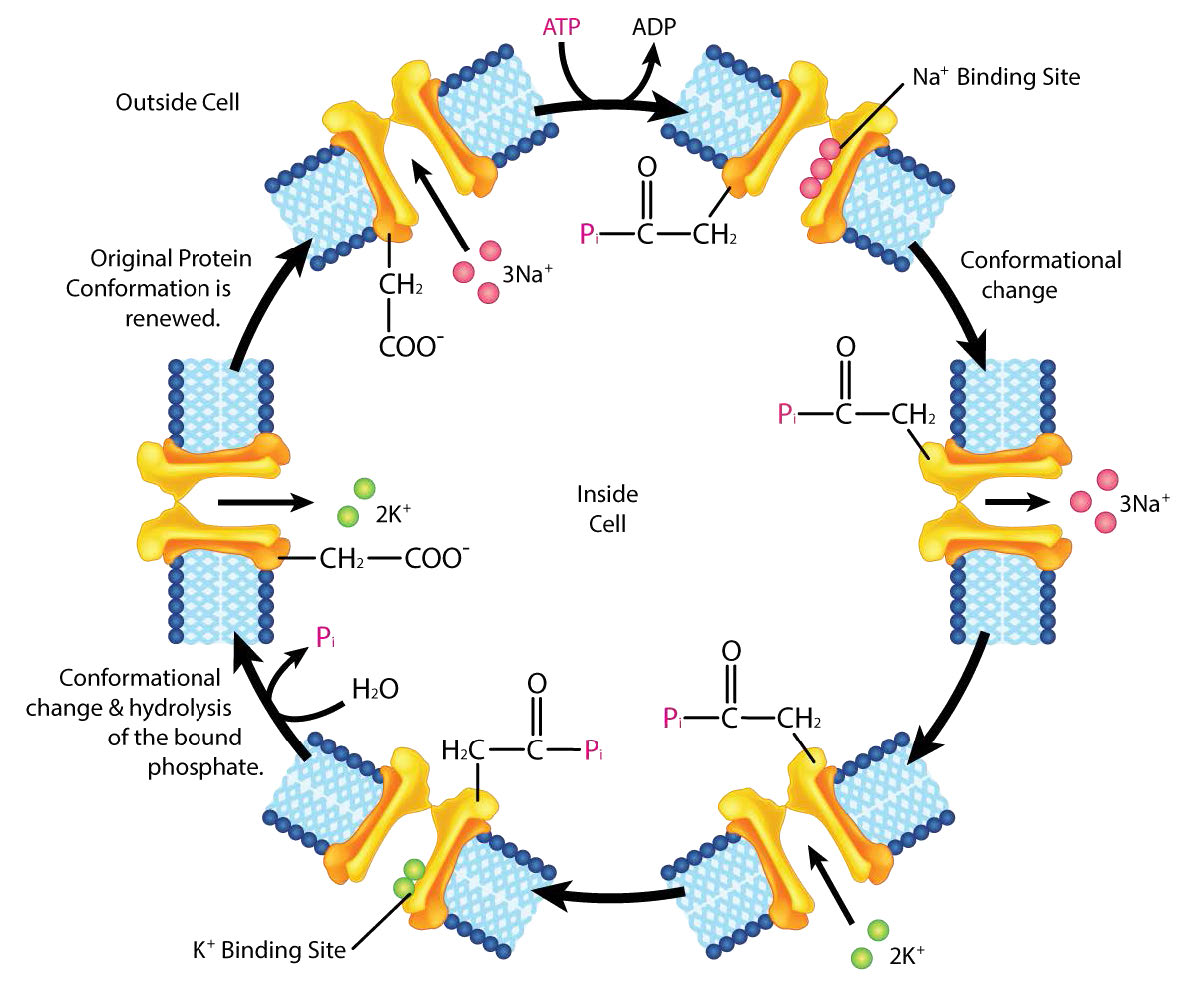
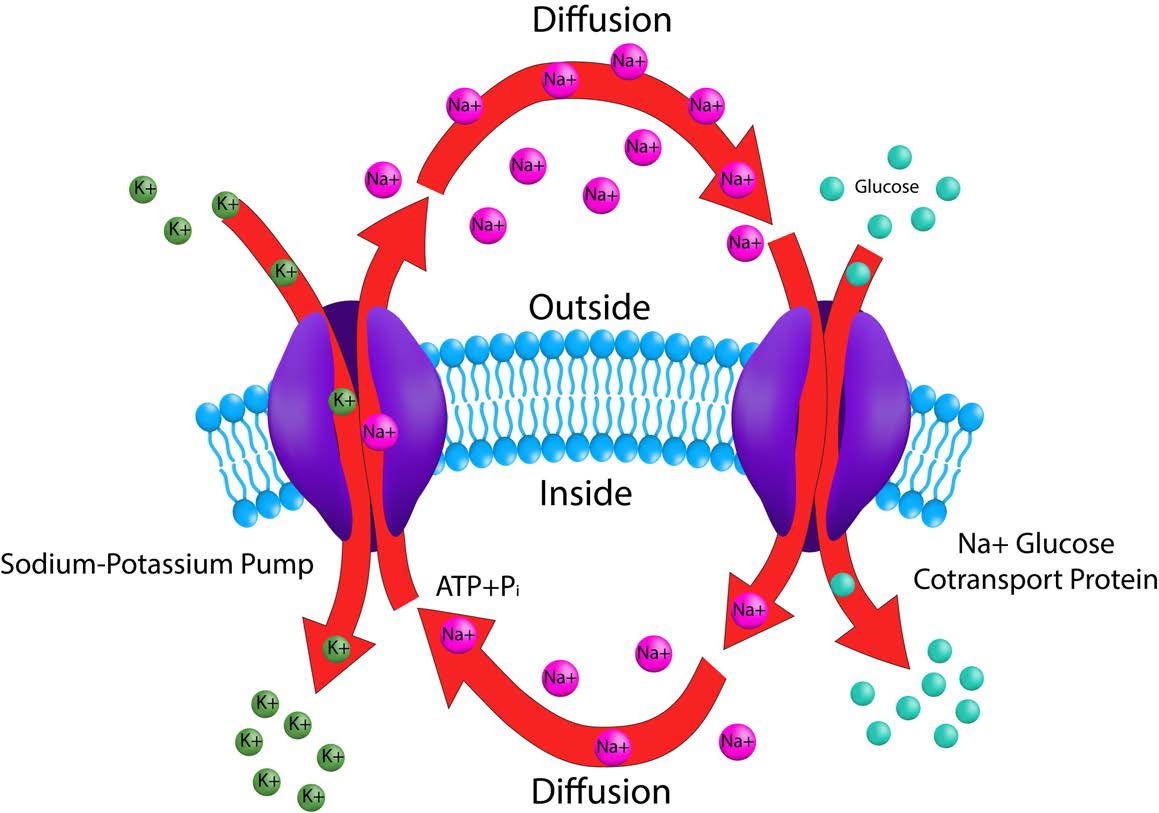
Важливим інтегральним мембранним транспортним білком є антипорт Na+/K+ ATPase (рис. 3.37 і 3.38), який переміщує три іони натрію з клітини і два іони калію в клітину з кожним циклом дії. У кожному випадку рух іонів відбувається проти градієнта концентрації. Оскільки три позитивні заряди переміщуються для кожного двох позитивних зарядів, що переміщуються, система є електрогенною.
Білок використовує енергію АТФ для створення градієнтів іонів, які важливі як для підтримки клітинного осмотичного тиску, так і (в нервових клітиках) для створення градієнтів натрію і калію, необхідних для передачі сигналу. Несправність системи призводить до набухання клітини через переміщення води в клітину через осмотичний тиск. Транспортер витрачає близько однієї п'ятої частини енергії АТФ клітин тварин. Цикл дії відбувається наступним чином:
- Насос зв'язує АТФ з подальшим зв'язуванням 3 іонів Na+ з цитоплазми клітини
- Гідроліз АТФ призводить до фосфорилювання аспартатного залишку насоса. ADP випущений
- Фосфорильований насос зазнає конформаційних змін, щоб піддавати іони Na+зовнішнім виглядом клітини. Вивільняються іони Na+.
- Насос зв'язує 2 позаклітинних іона К+.
- Насосні дефосфорилати змушують його піддавати іони K+цитоплазмі, коли насос повертається до початкової форми.
- Насос зв'язує 3 іони Na+, зв'язує АТФ і випускає 2 K іонів для перезапуску процесу
АТФаза Na+/K + класифікується як АТФаза P-типу. Ця категорія насосів відрізняється тим, що має фосфорильований проміжний проміжний продукт аспартату і присутній у біологічних царствах - бактеріях, археанах та еукаріотів.
Типи фаз
АТФАЗИ відіграють роль в синтезі або гідролізі АТФ і бувають декількох різних форм.
- F-атпази (F1Fo-ATPases) присутні в мітохондріях, хлоропластах і бактеріальних плазматичних мембранах і є основними синтезаторами АТФ для цих систем. Кожен використовує протонний градієнт як джерело енергії для виробництва АТФ. Комплекс V мітохондріона являє собою АТФазу F-типу.
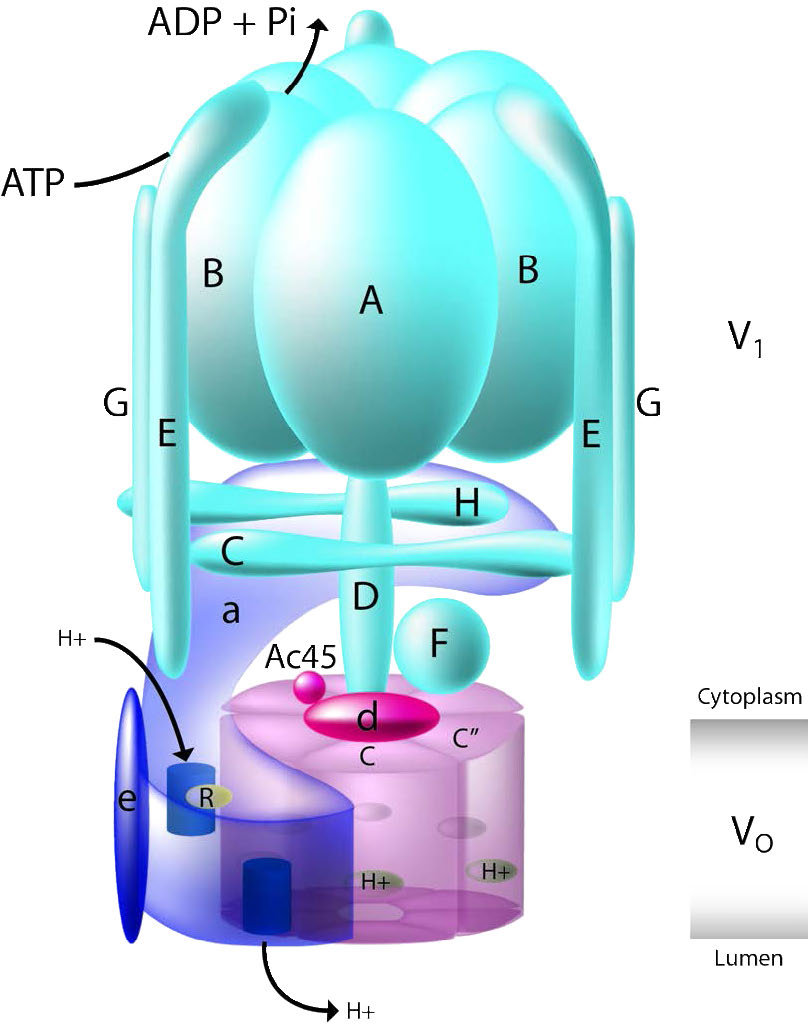
- V-атпази (V1VO-атпази) в основному зустрічаються в вакуолі еукаріотів. Вони використовують енергію гідролізу АТФ для транспортування розчинених речовин і протонів у вакуолі та лізосоми, тим самим знижуючи їх значення рН.
ATPases V-типу і F-типу дуже схожі за структурою. V-тип (рис. 3.39) використовує АТФ для перекачування протонів у вакуолі та лізосоми, тоді як F-типи використовують протонні градієнти мітохондрій та хлоропластів для виготовлення АТФ.
- А-атпази (A1aO-атпази) зустрічаються в археанах і схожі на F-атпази за функцією.
- Р-атпази (Е1Е2-атпази) знаходяться в бактеріях, грибах і в еукаріотичних плазматичних мембранах і органелах. Вони транспортують різноманітні іони через мембрани. Кожен має загальний механізм дії, який включає в себе аутофосфорилювання консервованої бічного ланцюга аспарагінової кислоти всередині нього. Приклади АТФАЗ P-типу включають АТФазу Na+/K + та кальцієвий насос.
- Е-Атпази - це ферменти, що знаходяться на поверхні клітин. Вони гідролізують ряд позаклітинних нуклеозидних трифосфатів, включаючи АТФ.
Нервова передача
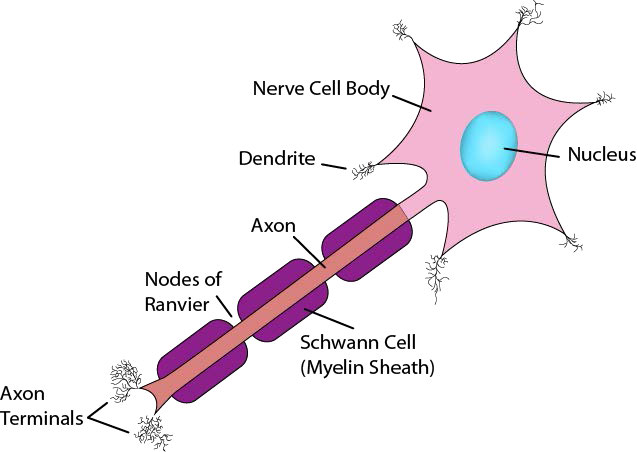
Тепер, коли ви бачили, як функціонує Na+/K + ATPase, доцільно обговорити, як нервові клітини використовують іонні градієнти, створені з його допомогою, для генерації та передачі нервових сигналів. Нейрони - це клітини нервової системи, які використовують хімічні та електричні сигнали для швидкої передачі інформації по тілу (рис. 3.40). Сенсорна нервова система пов'язує рецептори зору, слуху, дотику, смаку та запаху з мозком для сприйняття. Рухові нейрони проходять від спинного мозку до м'язових клітин. Ці нейрони мають клітинне тіло і дуже довге тонке розширення, яке називається аксоном, яке тягнеться від тіла клітини в спинному мозку аж до м'язів, якими вони керують. Нервові імпульси рухаються вниз по аксону, щоб стимулювати скорочення м'язів.
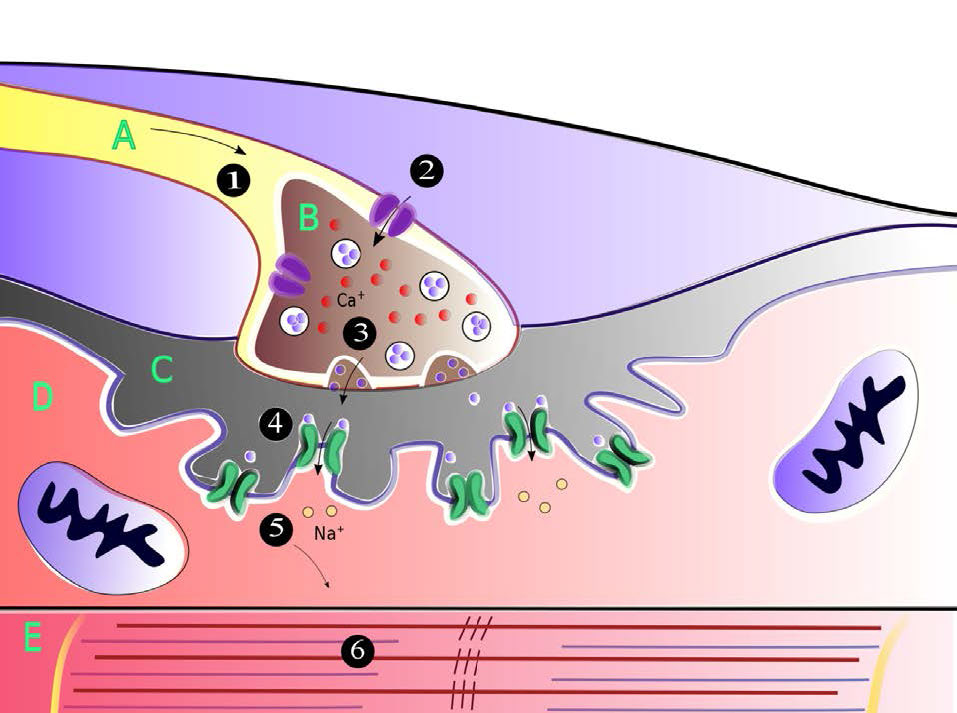
Сигнали подорожують через нейрони, в кінцевому підсумку надходять на з'єднання з іншими нервовими клітинами або клітинами мішенями, такими як м'язові клітини. Зверніть увагу, що нейрони не здійснюють фізичного контакту один з одним або з м'язовими клітинами. Крихітний простір між двома нейронами або між нейроном і м'язовою клітиною називається синаптичної щілиною. У синаптичній щілині нейрон вивільняє нейромедіатори, які виходять з нервової клітини і подорожують через перехід до клітини реципієнта, де генерується відповідь. Ця відповідь може створювати інший нервовий сигнал, якщо сусідня клітина є нервовою клітиною або це може бути м'язове скорочення, якщо реципієнтом є м'язова клітина (рис. 3.41).
Розглядаючи рух інформації через нервові клітини, ми обговоримо два етапи - 1) створення і поширення сигналу в нервовій клітині і 2) дію нейромедіаторів, що виходять з нервової клітини і транзитують синаптичний перехід.
Джерело сигналу
Створення нервового сигналу починається з подразника до нервової клітини. У разі скорочення м'язів рухова кора мозку посилає сигнали відповідним руховим нейронам, стимулюючи їх генерувати нервовий імпульс. Як генерується такий імпульс?
Потенціал відпочинку
У нестимульованому стані всі клітини, включаючи нервові клітини, мають невелику різницю напруг (звану потенціалом спокою) по плазматичній мембрані, що виникає внаслідок нерівномірного перекачування іонів по мембрані. Наприклад, АТФаза Na+/K + викачує іони натрію з клітини і іони калію в клітини. Оскільки три іони натрію відкачуються на кожні два закачані іони калію, створюється заряд і хімічний градієнт. Саме градієнт заряду породжує потенціал спокою.
Зміна градієнтів іонів через мембрани забезпечує рушійну силу для нервових сигналів. Відбувається це в результаті відкриття і закриття закритих іонних каналів. Відкриття затворів, щоб іони могли пройти через мембрану швидко змінює іонний баланс по мембрані, що призводить до нової різниці напруги, яка називається потенціалом дії. Саме потенціал дії є поштовхом нервової передачі.
ініціювання сигналу
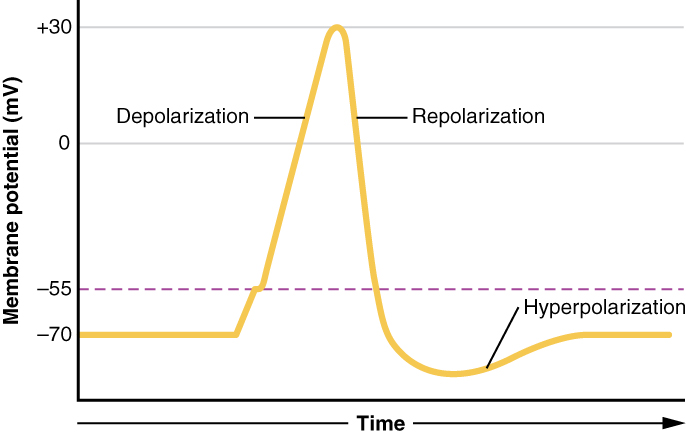
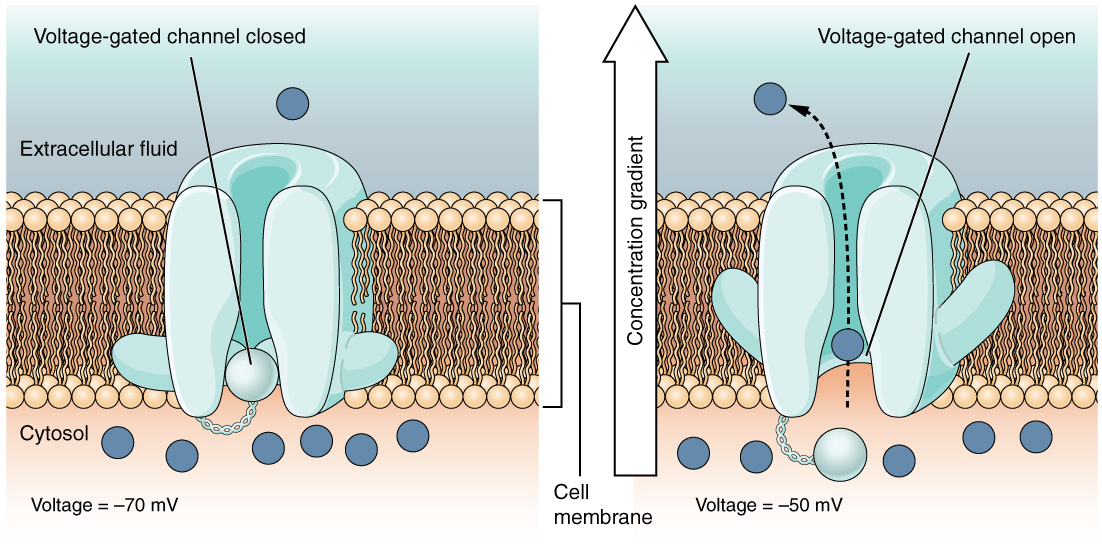
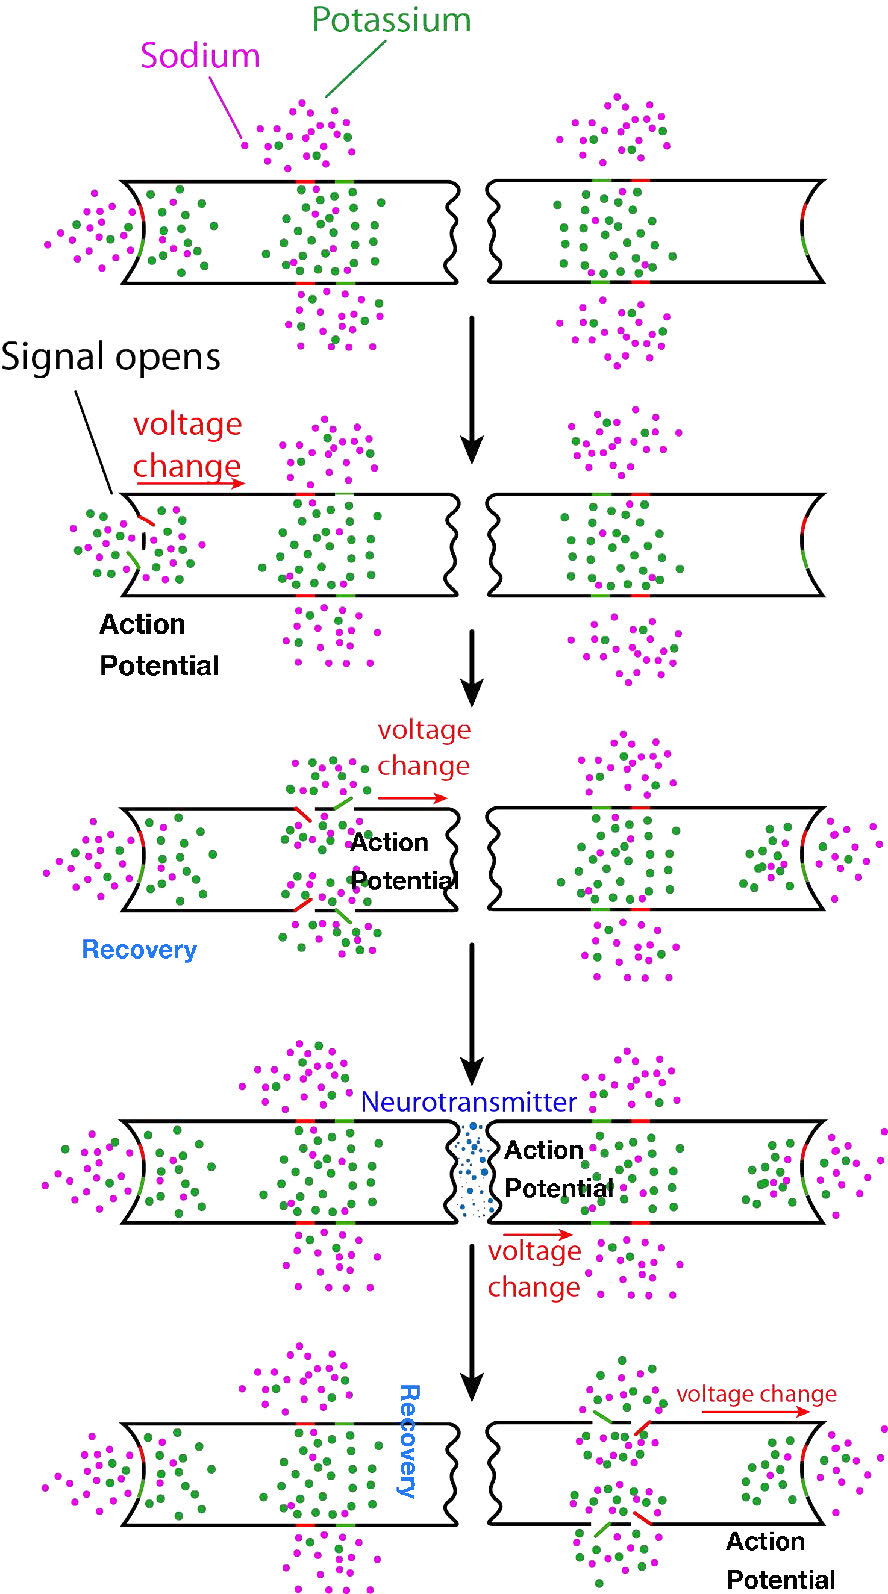
Сигнал, що генерується руховим нейроном, починається з відкриття натрієвих каналів в мембрані тіла нервової клітини, що викликає швидкий приплив іонів натрію в нервову клітину. Цей крок, званий деполяризацією (рис. 3.42), запускає електрохімічний сигнал - потенціал дії. Пам'ятайте, що АТФаза Na+/K + створила великий градієнт натрію, тому іони натрію спрямовуються в клітину при відкритті натрієвих каналів. Після початкової деполяризації ворота калієвого каналу, реагуючи на деполяризацію, відкриваються, дозволяючи іонам калію швидко дифузіюватися з клітини (пам'ятайте, іони К+ більш рясні всередині клітини). Ця фаза називається фазою реполяризації і під час неї затвори натрію закриваються.
Швидкий вихід іонів калію призводить до того, що різниця напруг «переповнює» потенціал спокою, а калієві ворота закриваються. Далі слідує так званий рефрактерний період, коли АТФаза Na+/K + починає свою роботу по відновленню вихідних умов шляхом викачування іонів натрію і іонів калію в нервову клітину. Зрештою, система відновлюється і потенціал спокою відновлюється. Ініціюючий кінець нервової клітини потім готовий до іншого сигналу.
Розповсюдження потенціалу дії
Те, що ми тут описали, - це тільки ініціація нервового сигналу в одній частині нервової клітини. Для отримання сигналу потенціал дії повинен подорожувати по всій довжині нервової клітини (аксона) і викликати хімічний сигнал, який буде випущений в синаптичну щілину, щоб дістатися до своєї мети. Поширення нервового сигналу (потенціалу дії) в вихідній нервовій клітині є функція всіх інших закритих іонних каналів (рис. 3.43), розташованих з боків нервової клітини. Натрієві та калієві ворота, що беруть участь у поширенні сигналу, діють у відповідь на зміни напруги, створені електрохімічним градієнтом, що рухається вниз по нервовій клітині (рис. 3.44). Пам'ятайте, що відкриття початкових воріт при ініціюванні сигналу створювало приплив іонів натрію і відтік іонів калію.
Рухомий сигнал
Ця хімічна та електрична зміна, яка створює потенціал дії, залишає кінець нервової клітини, де вона почалася, і рухається вниз по аксону до іншого кінця нервової клітини. По дорозі він стикається з більшою кількістю натрієвих і калієвих каналів. У кожному випадку вони реагують просто на зміну напруги потенціалу дії і відкриваються і закриваються, точно так само, як ворота відкриваються для запуску сигналу. Таким чином, швидка хвиля збільшення іонів натрію і зменшення іонів калію рухається уздовж нервової клітини, поширюючись (і посилюється) затворами, що відкриваються і закриваються, коли іони і заряди рухаються вниз по нервовій клітині. Зрештою, іонна приливна хвиля досягає кінця нервової клітини (термінал аксона), звернений до синаптичної щілини.
Перетин синаптичної щілини
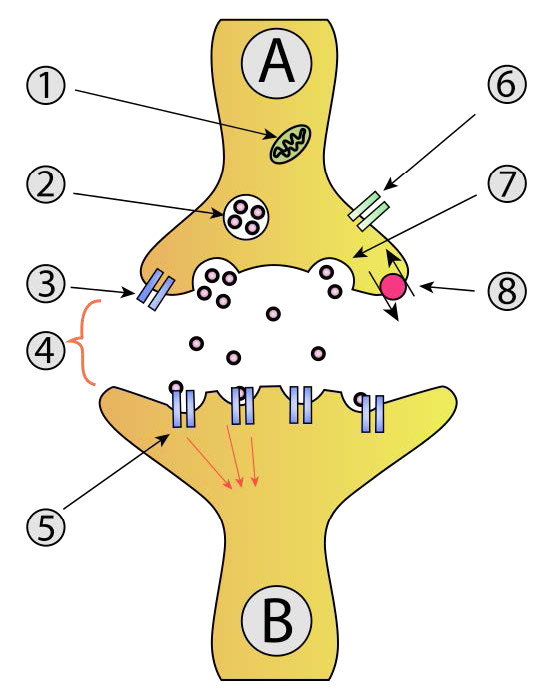
Щоб сигнал був прийнятий наміченою мішенню (постсинаптичної клітиною) від вихідного нейрона (пресинаптичного нейрона), він повинен перетнути синаптичну щілину і стимулювати сусідню клітину (рис. 3.45). Передача інформації через синаптичну щілину - це робота нейромедіаторів. Це невеликі молекули, синтезовані в нервових клітині, які упаковані в мембранні везикули, звані синаптичними везикулами в нервовій клітині. Нейромедіатори бувають всіх форм і хімічних форм, від невеликих хімічних речовин, таких як ацетилхолін, до пептидів, таких як нейропептид Y. Найпоширенішим нейромедіатором є глутамат, який діє на понад 90% синапсів у мозку людини.
Фільм 3.2 - Рух потенціалу дії по нервовій клітині - Вікіпедія
В ущелину
Коли потенціал дії пресинаптичного нейрона наближається до кінця аксона, синаптичні бульбашки починають зливатися з мембраною, і їх вміст нейромедіатора виливається в синаптичну щілину. Потрапивши в ущелину, нейромедіатори дифузно, деякі з них досягають рецепторів на постсинаптичної клітці. Зв'язування нейромедіатора з рецепторами на мембрані постсинаптичної клітини стимулює відповідь.
Для рухових нейронів постсинаптична клітина буде м'язовою клітиною, а відповіддю буде м'язове скорочення/розслаблення. У цей момент нервова клітина, що виникає, зробила свою роботу і передала свою інформацію своїй безпосередній цілі. Якщо постсинаптична клітина є нервовою клітиною, процес повторюється в цій клітині, поки не потрапить до місця призначення.
Na+/транспортер глюкози
Всмоктування поживних речовин з травної системи необхідно для життєдіяльності тварин. Білок транспортування натрію/глюкози є електрогенним симптомом, який переміщує глюкозу в клітини кишечника. Він знаходиться в слизовій оболонці кишечника і проксимальному канальці нефрона нирки. Транспортна система натрію/глюкози функціонує в останньому для сприяння реабсорбції глюкози.
Насос працює спільно з транспортною системою Na+/K +. Градієнт іонів натрію, накопичений насосом Na+/K+, використовується як джерело енергії для руху глюкози в клітини (див. Рис. Використання іонного градієнта, встановленого окремим насосом, відоме як вторинний активний транспорт. Для слизової оболонки кишечника насос транспортує глюкозу з кишечника і в клітини кишечника. Пізніше глюкоза експортується з іншого боку клітин кишечника в інтерстиціальний простір для використання в організмі.
Кальцієві насоси
Іони кальцію необхідні для м'язового скорочення і відіграють важливу роль як сигнальні молекули всередині клітин. Крім того, коли концентрації кальцію підвищуються занадто високо, ДНК в хромосомах може випасти в осад. Тому концентрація кальцію в клітині контролюється ретельно. Він утримується дуже низько в цитоплазмі в результаті дії насосів, як в плазматичній мембрані, які викачують кальцій назовні з цитоплазми, так і в органелах, таких як ендоплазматичний ретикулум (саркоплазматичний ретикулум м'язових клітин), які викачують кальцій з цитоплазми і в ці органели.
Відкриття кальцієвих каналів, таким чином, збільшує концентрацію кальцію швидко в цитоплазмі, що призводить до швидкої реакції, незалежно від того, є намір сигналізацією або скороченням м'язи. Після отримання відповіді кальцій відкачується назад з цитоплазми відповідними кальцієвими насосами.
Деякі кальцієві насоси використовують АТФ як джерело енергії для переміщення кальцію, а інші використовують іонні градієнти, такі як натрій для тієї ж мети.
Na+/Ca++ транспортер
Один кальцієвий насос, що представляє інтерес, використовує градієнт натрію як джерело енергії. Це натрієвий/кальцієвий насос. Ця електрогенна антипортова система використовує рух натрію в клітину як рушійну силу для переміщення кальцію з клітини, хоча його напрямок може змінитися за деяких обставин. Насос - це система високої продуктивності для швидкого переміщення великої кількості кальцію, переміщаючись до 5000 іонів кальцію в секунду і знаходиться в багатьох тканині з багатьма функціями.
Наперстянка
Одна з важливих функцій насоса Na+/Ca++ відбувається в клітині серця. Ca++ важливий для скорочення серцевого м'яза. Витік кальцію з клітин - це нормальна робота насоса, однак під час висхідного ходу циклу відбувається великий рух іонів натрію в клітину серця. Коли це відбувається, насос повертається назад і ненадовго викачує Na+ і Ca++. Оскільки кальцій допомагає стимулювати скорочення серцевого м'яза, це може допомогти змусити серце битися сильніше і є центром використання наперстянки для лікування застійної серцевої недостатності.
Наперстянка блокує натрій-калієву АТФазу і втручається в градієнт іонів натрію. Як зазначалося вище, при орієнтації градієнта Na+ в неправильному напрямку відбувається закачування кальцію. Тому наперстянка використовується для лікування застійної серцевої недостатності, оскільки він збільшує концентрацію кальцію в клітині серця, сприяючи більш сильним ударам.
ABC транспортери
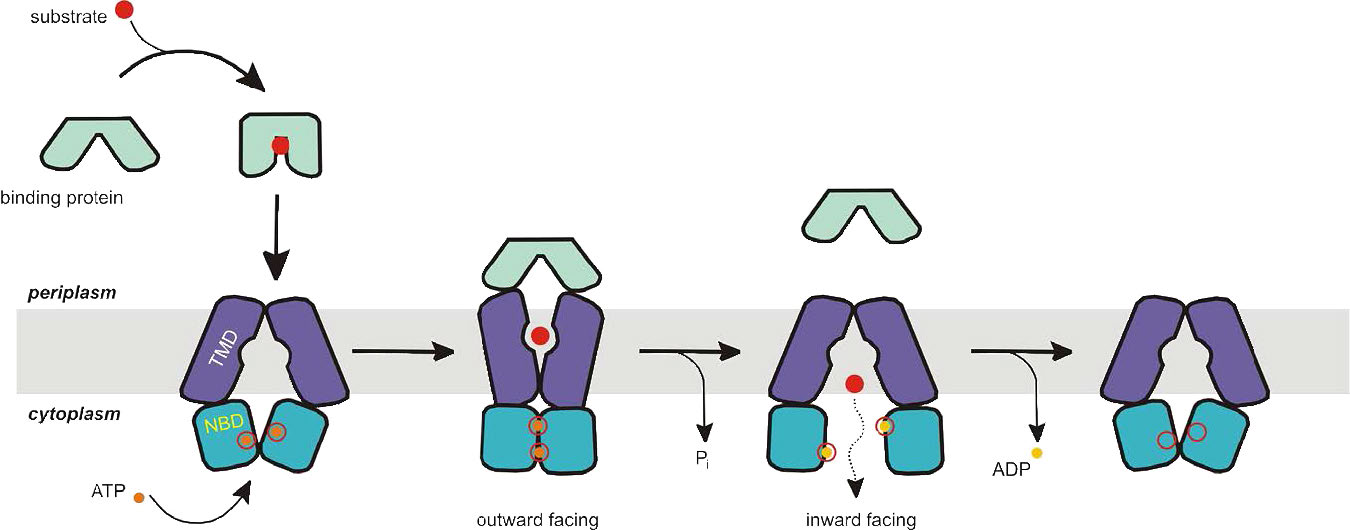
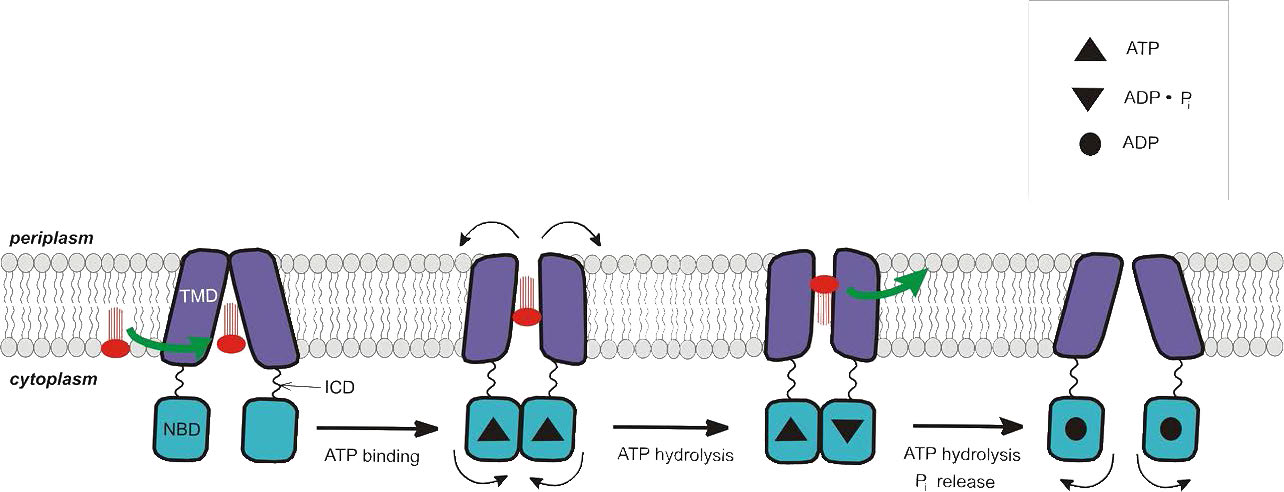
Транспортери ABC - це ще один клас трансмембранних білків, які використовують енергію АТФ для транспортування речей проти градієнтів концентрації (рис. 3.47 та 3.48). Це суперсімейство білків включає сотні білків (48 лише у людини) і охоплює всі існуючі філи від прокаріотів до людини. Ці білки функціонують не тільки в мембранному транспорті, але і в процесах, які включають репарацію ДНК і процес трансляції.
Транспорт
Речовини, які транспортери ABC переміщаються через мембрани, включають продукти метаболізму, ліпіди, стерини та наркотики. Транспортери ABC функціонують у мультимедикаментозній резистентності багатьох клітин і забезпечують стійкість до антибіотиків у бактерій, а також стійкість до хіміотерапії у вищих клітинок, експортуючи препарати, що використовуються для лікування обох цих типів клітин.
Транспортери ABC поділяються на три основні групи - 1) імпортери (лише прокаріоти); 2) експортери (прокаріоти та еукаріоти) та 3) нетранспортери, які виконують роль у відновленні та трансляції ДНК. Всі транспортні білки ABC мають чотири білкові домени - два, які є цитоплазматичними і два, які пов'язані мембраною. Вони по черзі відкриті для цитоплазматичної або позаклітинної (або периплазматичної) областей і це контролюється гідролізом АТФ.
Хвороба
Транспортери ABC відіграють роль у муковісцидозі та інших спадкових захворюваннях людини. Вони дуже беруть участь у виробленні резистентності до декількох препаратів різноманітною групою клітин. Транспортери ABC забезпечують стійкість до кількох ліків шляхом вигнання наркотиків з клітин. Білок ABCB1, наприклад, викачує з клітини препарати для придушення пухлини. Інший транспортер ABC, відомий як Pgp, транспортує органічні катіонні або нейтральні сполуки.
муковісцидоз
Муковісцидоз (CF) - аутосомно-рецесивне генетичне захворювання, що виникає внаслідок мутацій в обох копіях гена білка трансмембранного регулятора провідності муковісцидозу (CFTR). Ця транспортерна система ABC, яка переміщує іони хлориду та тіоціанату через мембрани епітеліальних тканин, надає свою дію здебільшого в легенях, але підшлункова залоза, печінка, нирки та кишечник також впливають на неї.
Функція
CFTR відіграє роль у виробництві поту, слизу та травних рідин. До проявів захворювання відносять утруднене дихання і перепродукування слизу в легенях. Коли CFTR функціональний, ці рідини в нормі тонкі, але коли ген нефункціональний, вони стають набагато товщі і є точками зараження.
CFTR містить два АТФ-гідролізуючі домени та два домени, що перетинають клітинну мембрану, з 6 α-спіралями кожен. Він може бути активований фосфорилуванням CAMP-залежною протеїнкіназою. Карбоксильний кінець CFTR пов'язаний з цитоскелетом доменом PDZ.
лактоза пермеза
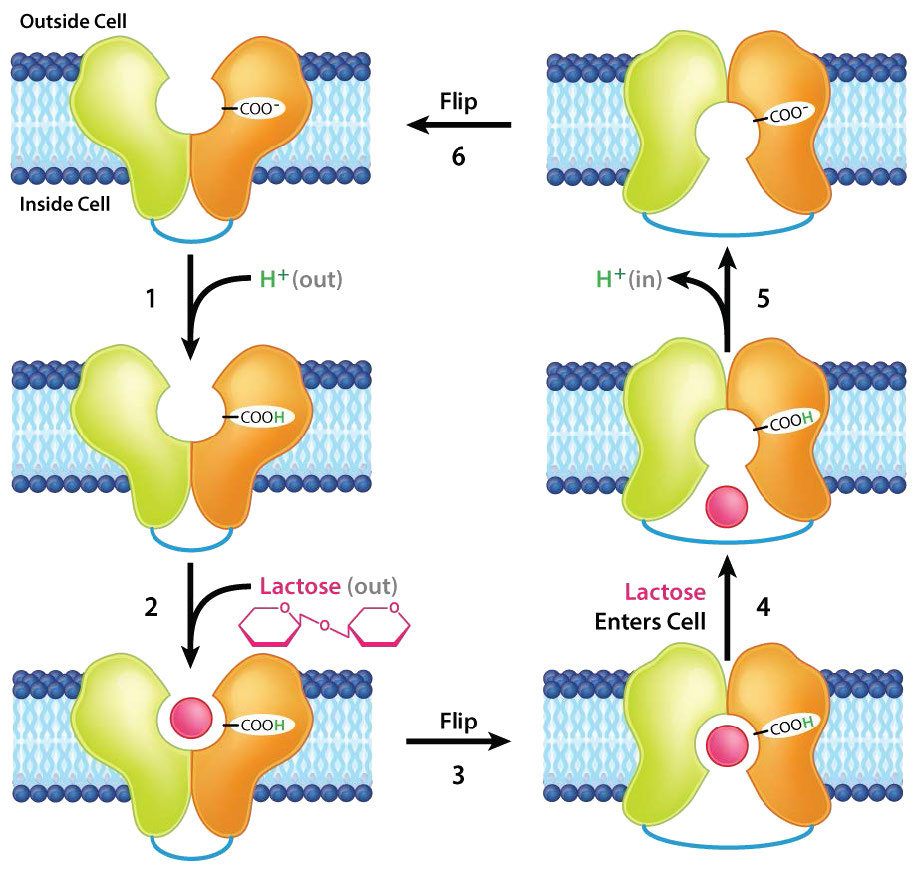
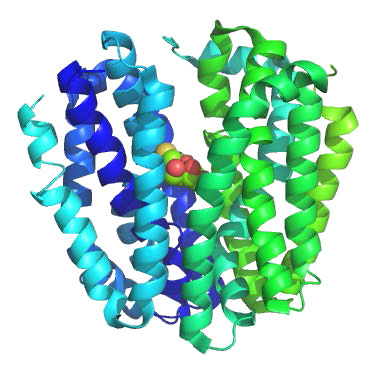
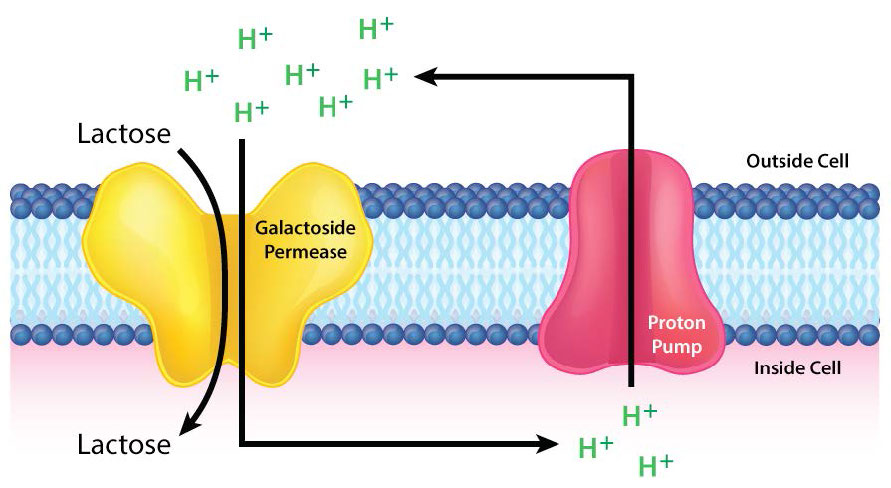
Ще одним невід'ємним мембранним протеїном, що виконує активний транспорт, є лактоза Полегшує рух цукрової лактози по ліпідному бішару клітинної мембрани (рис. 3.49- 3.51). Транспортний механізм класифікується як вторинний активний транспорт, оскільки він використовує внутрішньо спрямований електрохімічний градієнт H+як джерело енергії. Коли лактоза транспортується в клітини, вона розщеплюється на її замінники моносахаридні цукру - глюкозу і галактозу - для створення енергії.
Фермент, що каталізує цю реакцію, відомий як лактаза і його дефіцит у людини призводить до непереносимості лактози (див. ТУТ).
ГЛЮЦ
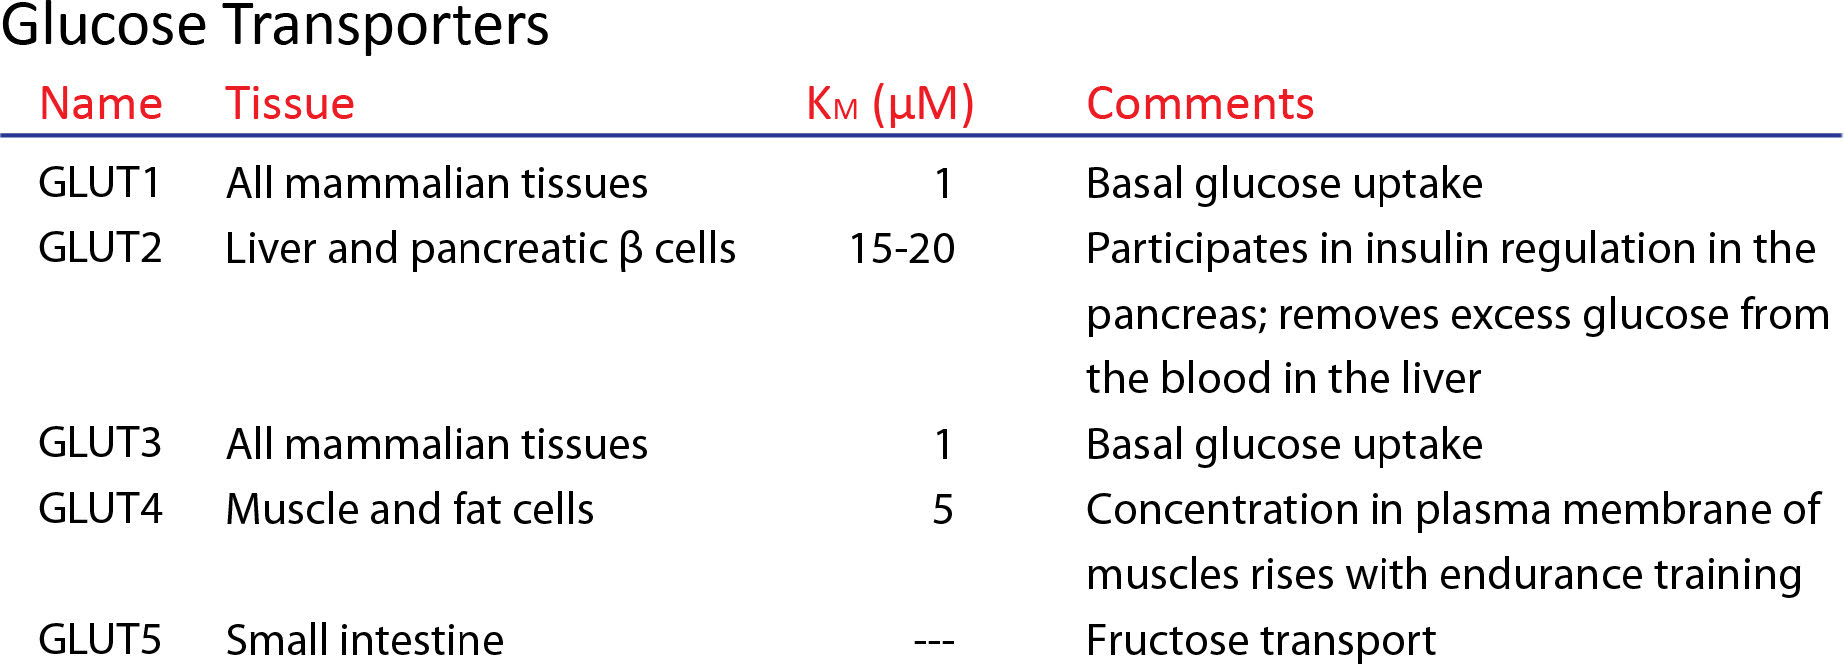
GLUTs (Глюкоза Транспортні білки) - це однопортні інтегральні мембранні білки III типу, які беруть участь у транспорті глюкози через мембрани в клітини. ГЛЮТ міститься у всіх філах і в достатку у людини, з 12 генами GLUT. GLUT1, в еритроцитах добре вивчений. Через GLUT 1 глюкоза надходить і проходить через неї за допомогою полегшеної дифузії зі швидкістю, яка на 50 000 вище, ніж при її відсутності. ГЛЮКИ різного типу знаходяться в різних клітині організму. Той, що знаходиться в еритроцитах, відомий як GLUT 1 і має 12 мембранних гідрофобних спіралей.
Хоча структура GLUT 1 невідома, припускається, що спіралі 12 утворюють камеру, здатну утворювати гідрофільні зв'язки з глюкозою для полегшення її проходження.
GLUT 1 рівні в еритроцитах підвищуються, оскільки рівень глюкози знижується і знижується, коли рівень глюкози знижується. GLUT 1 також може транспортувати аскорбат (вітамін С) на додаток до глюкози у ссавців (наприклад, людей), які не виробляють власного вітаміну С.
Перенасичення 4
GLUT 4 регулюється інсуліном і міститься в основному в жировій і поперечно-смугастої м'язової тканини. Інсулін змінює внутрішньоклітинні шляхи торгівлі у відповідь на підвищення рівня цукру в крові, щоб сприяти руху різних білків GLUT (включаючи GLUT 4) від внутрішньоклітинних бульбашок до клітинної мембрани, стимулюючи тим самим поглинання глюкози. GLUT 4 також міститься в гіпокампі, де, якщо торгівля людьми порушена, результатом може бути депресивна поведінка та когнітивна дисфункція.
Для всіх білків GLUT ключовим фактором збереження глюкози в клітині є фосфорилювання її ферментом гліколізу, гексокіназою, в цитоплазмі. Фосфорильовані молекули не можуть потрапляти в ГЛЮТ і не мають легких засобів виходу з клітини.
Відстань Ед
На мелодію «Містера Еда»
Метаболічні мелодії Сайт ТУТ
Курс є джерелом,
звичайно, звичайно
З усіх знань, які ми схвалюємо
Основною силою для краще/гіршого є кампус Відстань Ед
Це правда, щоб аутсорсинг курсу коледжу
Є кілька стандартів, які слід застосовувати
Довгі і короткі ми зміцнюємо кампус Відстань Ед
Міст
Класний клас збирається щотижня в один і той же час щодня
Але Distance Ed є найбільш унікальним - його гнучкий графік в порядку
Електронний курс - джерело, звичайно,
Онлайн-допомоги для лабораторних звітів
Ви не зараховані на онлайн-курс?
Тоді підпишіться на це!
«Ви будете любити відстань Ед»
Запис Девіда Сіммонса
Тексти пісень Кевіна Ahern
Запис Девіда Сіммонса Тексти пісень Кевіна Ahern
313
Це одна година, і
Ahern's talkin'
Хендерсон і
Hasselbalch і
PKa і
буфери Я повинен знати
Ця пісня для BB три п'ять о
Я сподіваюся, що, можливо,
він буде думати, як ми
написали наші відповіді
не був божевільним,
мені дійсно потрібен
частковий кредит - так що
ця пісня для BB три п'ять о
Це дійсно groovy
, що це покращує мене
Перегляд лекцій
У фільмах Quicktime
мені дійсно потрібно
піти і завантажити ці
Подкасти для BB три п'ять о
Ця пісня для BB 3-5-0
На мелодію «Ця земля моя земля»
Метаболічні мелодії Сайт ТУТ
Я відчуваю себе маніакальним,
я в паніці,
я краще вивчу
Мій старий органічний
Він має реакції
, які мені потрібно знати
Ця пісня для BB три п'ять ой
Я знаю
, що він сказав це Ось чому я боюся, тому що я пропустив п'ятницю
Extra credit
'twil pro'bly переслідують мене
, що низько ze-ro
Grade в BB три п'ять о
Це може бути стеричним
або езотеричним
, що вуглеці стають настільки
аномерними,
я занадто істеричний,
краще відпустіть
цю пісню для BB три п'ять ой
Запис Тіма Карплюс
Тексти пісень Кевіна Ahern
Запис Тім Карплюс Тексти пісень Кевіна Ahern